Revista Mexicana de Ciencias Forestales Vol. 17 (98)
Dasonomía Urbana (2026)
DOI: https://doi.org/10.29298/rmcf.v17i98.1690 Artículo de investigación
Banco de semillas del suelo de especies arbustivas y arbóreas en vertederos urbanos clausurados Soil seed bank of shrub and tree species in closed urban landfills
Renata Valdes-Alameda1*, Erik Manuel Aldape Becerra1, Jop Ruben Escobedo-Cruz2, Julia Amalia Hernández González2, Homero Garate-Escamilla1 |
Fecha de recepción/Reception date: 14 de mayo de 2026.
Fecha de aceptación/Acceptance date: 18 de septiembre de 2026.
_______________________________
1Universidad Autónoma de Nuevo León, Facultad de Ciencias Forestales. México.
2Bio Nodo. México.
*Autor para correspondencia; correo-e: renatavalameda@gmail.com
*Corresponding author; e-mail: renatavalameda@gmail.com
Resumen
Las áreas de disposición de residuos clausuradas e inmersas en la matriz urbana enfrentan retos particulares para la regeneración natural, ya que el suelo de cobertura utilizado en su cierre carece, generalmente, de un banco de semillas del suelo (BSS) preexistente, y su aislamiento limita la llegada de propágulos por dispersión. Por lo tanto, su estudio contribuye a comprender los procesos de colonización y regeneración de hábitats de reciente formación en el entorno urbano y permite determinar las acciones de rehabilitación necesarias. En este trabajo se describieron y se exploraron las diferencias en el BSS de especies leñosas en dos vertederos de residuos de demolición y construcción con distinto tamaño (1 y 4.5 ha) y tiempo de clausura (15 y 25 años), ubicados en un parque industrial del Área Metropolitana de Monterrey, México. Se registraron en total seis especies, todas comunes del área estudiada, con una densidad de 120±57.10 semillas m-2 en el sitio de 15 años y de 182.86±81.91 semillas m-2 en el de 25 años. La riqueza y densidad fueron similares entre las áreas (P>0.05) y el patrón espacial de las semillas fue agrupado en ambos sitios (p<0.001). Neltuma laevigata concentró la mayor abundancia en los dos vertederos. El BSS actual constituye una vegetación potencial restringida a corto plazo, por lo que se recomienda complementar con acciones de rehabilitación ecológica activa con especies nativas del Matorral espinoso tamaulipeco.
Palabras clave: Área Metropolitana de Monterrey, dispersión de semillas, matorral espinoso tamaulipeco, matriz urbana, Neltuma laevigata (Humb. & Bonpl. ex Willd.) Britton & Rose, rehabilitación ecológica.
Abstract
Closed landfills located within the urban matrix face particular challenges for natural regeneration, since the cover soil used in their closure generally lacks a preexisting soil seed bank (SSB), and their isolation limits the arrival of propagules through dispersal. Therefore, their study enhances our understanding of the processes of colonization and regeneration of newly formed habitats in urban environments and helps identify the necessary restoration measures. This study describes and explores differences in the woody species’ SSB at two demolition and construction waste landfills of different sizes (1 and 4.5 ha) and closure durations (15 and 25 years), located in an industrial park in the Monterrey Metropolitan Area, Mexico. A total of six species were recorded, all of which are common in the study area, with a density of 120±57.10 seeds m-2 at the 15-year-old site and 182.86±81.91 seeds m-2 at the 25-year-old site. Species richness and density were similar across the areas (P>0.05), and the spatial pattern of the seeds was clustered at both sites (p<0.001). Neltuma laevigata concentrated the highest abundance at the two landfills. The current SSB represents potential vegetation that is limited in the short term; therefore, it is recommended to supplement it with active ecological restoration efforts using native species of the Tamaulipan thorn scrub.
Keywords: Monterrey Metropolitan Area, seed dispersal, Tamaulipas thorn scrub, urban matrix, Neltuma laevigata (Humb. & Bonpl. ex Willd.) Britton & Rose, ecological restoration.
Introducción
Las zonas de disposición de residuos presentan degradación ambiental severa por la eliminación de la cubierta vegetal y la perturbación del suelo. Al clausurarse, los vertederos de residuos de construcción o de naturaleza inerte suelen cubrirse con suelo mineral, con frecuencia proveniente de horizontes profundos. Luego, son abandonados, por lo que quedan sujetos a procesos de regeneración natural de la vegetación, que dependen de la disponibilidad de propágulos y de las condiciones edáficas del lugar.
La expansión urbana ha incorporado a la ciudad vertederos antes ubicados en las periferias, que hoy funcionan como baldíos (sin uso definido), áreas verdes o zonas industriales, según las condiciones del sitio, el tipo de residuos y la planificación urbana (Hoefer et al., 2016; Vincevica-Gaile et al., 2023). En muchos casos, permanecen sin manejo específico, lo que limita o retrasa la regeneración vegetal y, con ello, la provisión de servicios ecosistémicos. La dispersión de semillas y el banco de semillas del suelo (BSS) son mecanismos importantes para la regeneración natural tras las perturbaciones. Sin embargo, la pérdida y fragmentación del hábitat causadas por el desarrollo urbano limitan la llegada de propágulos, al modificar el movimiento de los vectores dispersores (Damschen et al., 2008; Gelmi-Candusso & Hämäläinen, 2019; Mendes et al., 2025).
En estos entornos aislados, el BSS adquiere particular relevancia, ya que ahí las semillas pueden permanecer latentes por largos periodos, hasta tener las condiciones adecuadas para germinar (Fenner & Thompson, 2009). Su composición cambia en el tiempo y en el espacio; por ejemplo, en estudios en vertederos clausurados se documenta un incremento en la riqueza de especies con el tiempo de cierre, asociado a la acumulación de propágulos provenientes de la vegetación circundante (Kim & Lee, 2005; Rebele & Lehmann, 2016; Robinson & Handel, 1993). Por lo tanto, el análisis del BSS proporciona información crucial para conocer la dinámica vegetal, interpretar su estado de conservación y determinar su potencial de regeneración natural (Ma et al., 2021).
Los vertederos clausurados, al carecer generalmente de un banco de semillas inicial en el suelo de cobertura (Kim & Lee, 2005), dependen casi por completo de la llegada externa de propágulos para iniciar su regeneración natural, la cual, como se mencionó, está limitada por el aislamiento propio de la matriz urbana. A esto se suma que las plántulas de las especies que logran llegar tienen dificultades para establecerse debido a las condiciones climáticas de la ciudad (Kisvarga et al., 2025).
Cuando la regeneración natural resulta insuficiente, puede complementarse con acciones de rehabilitación, entendida como la recuperación funcional del sitio sin necesariamente recuperar una proporción importante de la biota de un ecosistema de referencia (Gann et al., 2019). Al respecto, los estudios sobre recuperación vegetal en rellenos urbanos cerrados se enfocan en sitios restaurados de forma activa o no urbanizados (Pang et al., 2020; Rawlinson et al., 2004; Wong et al., 2016); y la investigación sobre el papel del BSS en la regeneración natural dentro de la matriz urbana es escasa, con trabajos que señalan una fuerte presencia de semillas de plantas ruderales o exóticas (Kim & Lee, 2005; Xia et al., 2024). Esta combinación de vertederos, BSS y matriz urbana permanece poco explorada.
El Área Metropolitana de Monterrey (AMM) ha experimentado un crecimiento acelerado que ha derivado en la fragmentación del paisaje y la generación de áreas muy perturbadas dentro de extensas zonas industriales (Jiménez-Pérez et al., 2022). Por lo tanto, el estudio del BSS ofrece una oportunidad para comprender los procesos de sucesión primaria en hábitats de reciente formación. El objetivo de este trabajo fue describir y comparar el banco de semillas del suelo de especies arbustivas y arbóreas en dos áreas urbanas previamente utilizadas para la deposición de residuos de demolición y construcción (RDC), con distinto tamaño y tiempo de cierre para identificar su potencial de regeneración natural y orientar acciones de rehabilitación. Se planteó, de manera exploratoria, que el sitio de mayor antigüedad y superficie presentará más riqueza y densidad de semillas, dado que su oportunidad temporal y espacial de ingreso de propágulos al BSS son superiores.
Materiales y Métodos
El estudio se llevó a cabo en dos áreas contiguas, previamente, utilizadas como vertederos de RDC y grafito, ubicadas en un parque industrial del área urbana del municipio Apodaca, Nuevo León (Figura 1). La vegetación presente antes del uso urbano, así como la actual que se distribuye en las zonas circundantes no urbanizadas, corresponde al matorral espinoso tamaulipeco (Instituto Nacional de Estadística, Geografía e Informática [INEGI], 1976). El parche de vegetación más cercano a los vertederos (en regeneración, con vegetación escasa) se ubica a 250 m; el parche con mayor abundancia vegetal aparente en el entorno inmediato se ubica a 1 500 m. Ninguno corresponde a matorral maduro, sino a vegetación secundaria (reconocimiento directo del sitio).
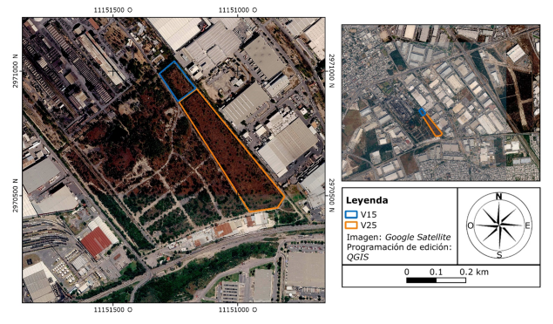
V15 = Vertedero cerrado hace 15 años; V25 = Vertedero cerrado hace 25 años.
Figura 1. Mapa de ubicación de las áreas de estudio.
El clima de la región es semiseco muy cálido y cálido (BS1(h')), con una precipitación anual de 600 a 650 mm y una temperatura media anual de 22 °C (INEGI, 2002). Ambos sitios, al término de su operación, fueron cubiertos con suelo mineral similar como medida de clausura, también comparten la pendiente y ninguno recibió manejo posterior al cierre (datos precisos restringidos por la empresa responsable). Estos difieren en tamaño y en el tiempo transcurrido desde su cierre: el sitio de 1 ha fue clausurado hace 15 años (V15), mientras que el de 4.5 ha hace 25 años (V25).
En el diseño de muestreo se consideró inicialmente una separación de 30 m entre transectos y 40 m entre puntos de recolecta, siguiendo un criterio sistemático orientado a evitar que puntos consecutivos quedaran bajo la influencia de la copa de un mismo individuo arbóreo. Sin embargo, en V15 la reducida extensión del sitio no permitió ubicar un número adecuado de puntos de recolecta bajo ese esquema, por lo que el intervalo se ajustó a 20 m, con el objetivo de lograr una cobertura representativa del sitio en función de su superficie.
Por lo tanto, en cada área se establecieron tres transectos de muestreo separados por 30 m, con puntos de recolecta cada 20 m en V15 y cada 40 m en V25. Se recolectaron 10 muestras de suelo en V15 y 35 en V25 (20×20×3 cm de alrededor de 900 g); para ello se siguió el protocolo de estudios previos del BSS en el matorral espinoso tamaulipeco para facilitar comparaciones (Valdes-Alameda et al., 2021). La recolecta se realizó en julio, durante y después de la mayoría de los eventos de dispersión del verano (García-Alanís, 1997) y antes de las lluvias otoñales asociadas con la germinación (Jurado et al., 2006).
Para la extracción de semillas, principalmente de especies arbóreas y arbustivas, se empleó el método de tamizado, con tamices de 5 y 3 mm. Se contabilizaron solo las viables a simple vista; es decir, aquellas morfológicamente íntegras, sin fracturas, de tamaño adecuado y llenas. De estas, se evaluó la viabilidad mediante prueba de corte, si había menos de cinco semillas se probaron todas y si había más, se probó una submuestra aleatoria de cinco. La identificación se hizo con el apoyo del banco de semillas de la Facultad de Ciencias Forestales de la Universidad Autónoma de Nuevo León.
La distribución de los datos se determinó mediante una prueba de Shapiro-Wilk (Shapiro & Wilk, 1965). La densidad y la riqueza de semillas se compararon entre sitios con la prueba no paramétrica U de Mann-Whitney (Mann & Whitney, 1947). La agregación espacial de las semillas se evaluó mediante el Índice de Morisita (Ecuación 1), calculado sobre la densidad total de semillas por muestra y estandarizado (Ip) según Smith-Gill (1975). La suficiencia del muestreo se evaluó mediante curvas de acumulación de especies (1 000 permutaciones). Para las curvas de acumulación, para el Índice de Morisita y el estimador de riqueza Chao2 (Chao, 1987) se empleó el paquete Vegan de R versión 2.7-6 (Oksanen et al., 2026). Los análisis estadísticos se realizaron en el software R versión 4.4.1 (R Core Team, 2026) en el entorno RStudio versión 2026.0.40+526 (RStudio Team, 2026).
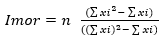 (1)
Donde:
Imor = Índice de Morisita
n = Número de muestras
xi = Número de semillas registradas en la muestra i
Resultados y Discusión
El estimador Chao2 de V15 arrojó una riqueza total estimada de 6.80 (Intervalo de confianza [IC] 95 %: 0.15-13.45) y su curva de acumulación de especies mantuvo una pendiente positiva, aunque con una ganancia reducida hacia el final (Figura 2A). La curva de acumulación de V25 alcanzó una meseta claramente definida a partir de las 30 muestras (Figura 2B) y su estimador Chao2 fue de 6.24 (IC 95 %: 4.85-7.64), valor muy cercano a lo observado. Lo anterior indica que el muestreo fue adecuado para V25 e insuficiente para V15 debido al menor número de muestras. No obstante, pese a la incertidumbre en la estimación para V15, la riqueza observada en ambos sitios (cinco en V15 y seis en V25) se mantiene baja en términos absolutos frente al matorral de referencia.
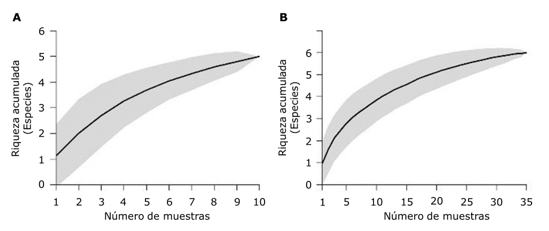
A = V15; B = V25. La línea negra representa la riqueza media acumulada y el área sombreada la desviación estándar.
Figura 2. Curva de acumulación de especies para el sitio V15 y V25.
La distribución de los datos no fue normal (P<0.01), por lo que para los análisis comparativos se emplearon pruebas no paramétricas. Se identificaron seis especies en total, cinco de ellas en V15 y seis en V25 (U=173.5, P=0.96), mientras que la densidad en V15 fue de 120±57.10 semillas m-2 y en V25 de 182.86±81.91 semillas m-2 (U=185, P=0.77; Cuadro 1). No obstante, además del tamaño de muestra, hubo una alta dispersión en los datos de densidad (Cuadro 1) por lo que esta prueba tuvo poder limitado para detectar diferencias reales entre sitios.
Cuadro 1. Comparación de la riqueza y densidad del banco de semillas del suelo citadas en estudios del matorral espinoso tamaulipeco.
Familia |
Nombre científico |
Nombre común |
Densidad (semillas m-2) |
Frecuencia (%) |
Densidad (semillas m-2) |
Frecuencia (%) |
V15 (n=10) |
V25 (n=35) |
|||||
Cannabaceae |
Celtis pallida Torr. |
Granjeno |
2.50±2.50 (0.00; 0-25) |
10 % |
2.14±1.58 (0.00; 0-50) |
6 % |
Fabaceae |
Leucaena leucocephala (Lam.) de Wit |
Leucaena |
17.50±11.81 (0.00; 0-100) |
20 % |
1.43±1.43 (0.00; 0-50) |
3 % |
Fabaceae |
Neltuma laevigata (Humb. & Bonpl. ex Willd.) Britton & Rose |
Mezquite |
70.00±39.05 (0.00; 0-375) |
40 % |
82.86±81.39 (0.00; 0-2 850) |
9 % |
Fabaceae |
Parkinsonia aculeata L. |
Retama |
15.00±15.00 (0.00; 0-150) |
10 % |
25.00±10.65 (0.00; 0-250) |
20 % |
Fabaceae |
Vachellia farnesiana (L.) Wight & Arn. |
Huizache |
0.00±0.00 (0.00; 0-0) |
0 % |
2.86±2.24 (0.00; 0-75) |
6 % |
Arecaceae |
Washingtonia filifera (Rafarin) H. Wendl. ex de Bary |
Palma Washingtonia |
15.00±10.00 (0.00; 0-100) |
30 % |
68.57±19.40 (25.00; 0-400) |
54 % |
Nota: Los valores de densidad se registran como media±error estándar (mediana; intervalo). La frecuencia representa el porcentaje de muestras en las que estuvo presente cada especie.
Se presentó una alta proporción de muestras vacías (50 % en V15 y 37 % en V25) y el Índice de Morisita mostró agregación espacial en ambos sitios (V15: Ip=0.60; V25: Ip=0.60; P<0.001). La especie más abundante en los dos vertederos fue Neltuma laevigata (Humb. & Bonpl. ex Willd.) Britton & Rose, con 58 % y 45 % del total de semillas registradas en V15 y V25, lo cual reveló una marcada concentración en una sola especie. Es importante señalar que el Índice de Morisita podría reflejar, principalmente, el patrón espacial de N. laevigata dada su dominancia, ya que el cálculo del patrón espacial por especie resultó inestable para aquellas con un número reducido de semillas.
Las especies registradas fueron características del matorral espinoso tamaulipeco o del entorno inmediato, lo que permitió inferir que las semillas llegaron por dispersión, desde la vegetación circundante. La presencia de Leucaena leucocephala (Lam.) de Wit y Washingtonia filifera (Rafarin) H. Wendl. ex de Bary, especies introducidas y ampliamente utilizadas en el arbolado urbano de la región (Jiménez-Pérez et al., 2025), refleja la influencia de la matriz urbana en la composición del BSS. L. leucocephala se dispersa mediante el viento, mientras que W. filifera por fauna generalista como Passer domesticus (Linnaeus, 1758) o Canis latrans Say, 1823, entre otros (Spennemann, 2020).
Por su parte, N. laevigata también es una especie zoocora (Jurado et al., 2001), y que una sola muestra concentrara la densidad más alta de sus semillas (2 850 semillas m-2, equivalente a 98.3 % del total registrado para la especie en ese sitio) es consistente con un patrón agregado de deposición, característico de este síndrome de dispersión. De manera similar, la presencia de Celtis pallida Torr., dispersada por aves (Jurado et al., 2001), indica que algunos dispersores utilizan esas áreas de manera ocasional.
En el AMM, el movimiento de fauna y la conectividad ecológica se han documentado, principalmente, en corredores ribereños (Castillo-Muñoz & Guzmán-Hernández, 2021), lo que sugiere que fuera de estos elementos la dispersión zoocora en la ciudad, aunque existe, opera de forma más limitada. La presencia de Vachellia farnesiana (L.) Wight & Arn. y Parkinsonia aculeata L., pese a carecer de un síndrome de dispersión especializado a distancia (Jurado et al., 2001), sugiere que otros mecanismos, no evaluados en el estudio, podrían contribuir a su presencia.
Si se considera que el suelo de cobertura carecía de un banco de semillas previo, la existencia de especies nativas del matorral sugiere una colonización activa, aunque de alcance limitado. Los parches de vegetación más próximos (250 y 1 500 m) contienen especies ruderales y de establecimiento temprano en la regeneración del matorral, lo que limitaría tanto la distancia, como la diversidad de propágulos de taxa arbóreas y arbustivas disponibles para ambos sitios.
La cercanía a fuentes de propágulos y la presencia de dispersores favorecen la incorporación de nuevas especies en vertederos clausurados (Robinson & Handel, 1993); sin embargo, ese proceso depende también de la riqueza de la fuente. Por ejemplo, en un vertedero conectado a un bosque en Berlín se documentó la incorporación de hasta 60 % de los taxones nativos en 20 años (Rebele & Lehmann, 2016), mientras que en lotes urbanos con vegetación fuente escasa y lejana, la diversidad se mantuvo baja independientemente del tiempo transcurrido (Johnson et al., 2018). No obstante, estos antecedentes provienen de otros contextos ecológicos, son coherentes con la posibilidad de que la calidad de la vegetación fuente, y no solo la distancia, limite la colonización en los sitios estudiados.
Para obtener un marco de referencia que permita interpretar la composición del BSS observada en los vertederos estudiados en relación con el potencial del ecosistema de referencia, se sintetizan los resultados de trabajos sobre BSS en áreas cercanas al sitio de estudio (Cuadro 2). La riqueza observada en este trabajo es menor que la indicada para zonas con erosión severa (10-12 spp.; Pando-Moreno et al., 2010), pero del mismo orden de magnitud. Las densidades se aproximan a las consignadas para matorral en regeneración, aunque con una variabilidad considerablemente mayor. Es importante precisar que debido a que no se encontraron estudios sobre el BSS en áreas urbanas de la región, los datos pertenecen a sitios de menor perturbación, por lo que esta comparación debe interpretarse en función de las diferencias metodológicas entre estudios.
Cuadro 2. Comparación de la riqueza y densidad del banco de semillas del suelo reportadas en estudios del Matorral espinoso tamaulipeco.
Autor y año |
Condición de sitio |
Riqueza |
Densidad (semillas m-2) |
Método |
Este estudio |
Vertederos clausurados |
5-6 spp. |
120 a 182 |
Tamizaje |
Martínez-Adriano et al. (2021) |
Fragmento de matorral |
30 spp. |
— |
Emergencia de plántulas |
Pando-Moreno et al. (2010) |
Con erosión severa y sin erosión |
10-12 spp. |
62 a 1 900 |
Tamizaje |
Valdes-Alameda et al. (2023) |
En regeneración (postpastoreo) |
57 spp. |
123 a 277 |
Emergencia de plántulas |
Valdes-Alameda et al. (2021) |
Fragmento de matorral |
14 spp. |
— |
Tamizaje |
— = Datos no registrados.
El método de tamizado empleado favorece la recuperación de semillas de especies leñosas y arbustivas que tienen mayor tamaño que las herbáceas y los pastos. Esta selección fue consistente con el enfoque del estudio en el componente leñoso del BSS. Por lo tanto, es probable que la diversidad de las especies, también relevantes para la conservación del ecosistema, esté subestimada. A esa limitación se suman otras propias del diseño, ya que el muestreo se realizó en una sola temporada, lo que impide capturar la variación estacional en la entrada de semillas y los sitios difieren en edad y superficie, por lo que no es posible separar el efecto individual de cada factor sobre la riqueza y la densidad del BSS. La viabilidad, además, se verificó solo en una fracción de las semillas mediante prueba de corte, por lo que la densidad total podría incluir semillas inviables no detectadas en la selección visual inicial.
Las decisiones metodológicas respondieron a restricciones de tiempo y recursos propias del estudio. Dado que el conocimiento de la composición del BSS es clave para orientar decisiones de restauración o rehabilitación, se recomienda que en investigaciones futuras se incremente el número de muestras y evalúe la variación estacional ajustada a las temporadas de dispersión y germinación del área. Si el interés se extiende a especies con semillas muy pequeñas, el método de emergencia de plántulas, aunque más demandante en tiempo, sería más apropiado.
Los vertederos estudiados representan una oportunidad para integrarlos en redes de espacios verdes urbanos. A pesar de las limitaciones observadas, los resultados ofrecen información valiosa sobre el potencial de regeneración natural de leñosas y son directamente aplicables para orientar acciones de rehabilitación, en particular mediante la reforestación con especies nativas atractivas para dispersores y en la actualidad ausentes en el BSS. Esto contribuiría a incrementar la conectividad ecológica, enriquecer el banco de semillas y reducir la marcada concentración de abundancia en una sola especie, observada en este estudio; con ello, se favorecería la resiliencia del BSS, con una vegetación más diversa, la provisión de servicios ecosistémicos como la regulación térmica, la captación de agua y el soporte a la biodiversidad. Asimismo, dada la abundancia de semillas de especies introducidas, es probable que continúen estableciéndose en el corto y mediano plazo, por lo que deberá considerarse su manejo, incluida la vegetación en pie, para reducir la competencia con las especies nativas.
Conclusiones
El tamaño y el tiempo de cierre no se tradujeron en diferencias detectables en la riqueza, ni en la densidad del BSS, aunque el poder estadístico limitado y el diseño de un solo sitio por categoría impiden descartar un efecto real de estas variables. Transcurridos entre 15 y 25 años desde su clausura, ambos sitios tienen un BSS con escaso enriquecimiento, alta abundancia de una especie y presencia de taxones introducidos. La regeneración natural espontánea, a partir de la composición actual del BSS, no parece suficiente para restablecer en el corto plazo una comunidad vegetal diversa. Por lo tanto, se recomienda complementar la regeneración natural con acciones de rehabilitación basadas en la reforestación.
Agradecimientos
Agradecemos al personal técnico de la empresa Bio Nodo por su apoyo en la colecta de muestras para la presente investigación.
Conflicto de intereses
No existe conflicto de intereses. Homero Gárate Escamilla and Renata Valdes-Alameda declaran no haber participado en el proceso editorial del manuscrito.
Contribución por autor
Renata Valdes-Alameda: desarrollo de la idea original, redacción inicial del manuscrito y adaptación a las directrices editoriales; Erik Manuel Aldape Becerra y Julia Amalia Hernández González: trabajo de campo y análisis de datos; Jop Ruben Escobedo-Cruz y Homero Garate-Escamilla: desarrollo de la idea original, revisión del texto y realización de correcciones.
Referencias
Castillo-Muñoz, M., & Guzmán-Hernández, J. L. (2021). Composición y estructura de la comunidad de aves en un corredor ribereño urbano del área metropolitana de Monterrey, Nuevo León, México. Huitzil Revista Mexicana de Ornitología, 22(2), Articulo e-628. https://www.scielo.org.mx/scielo.php?script=sci_arttext&pid=S1870-74592021000200003
Chao, A. (1987). Estimating the population size for capture-recapture data with unequal catchability. Biometrics, 43(4), 783-791. https://doi.org/10.2307/2531532
Damschen, E. I., Brudvig, L. A., Haddad, N. M., Levey, D. J., Orrock, J. L., & Tewksbury, J. J. (2008). The movement ecology and dynamics of plant communities in fragmented landscapes. Proceedings of the National Academy of Sciences, 105(49), 19078-19083. https://doi.org/10.1073/pnas.0802037105
Fenner, M., & Thompson, K. (2009). The ecology of seeds. Cambridge University Press. https://doi.org/10.1017/CBO9780511614101
Gann, G. D., McDonald, T., Walder, B., Aronson, J., Nelson, C. R., Jonson, J., Hallett, J. G., Eisenberg, C., Guariguata, M. R., Liu, J., Hua, F., Echeverría, C., Gonzales, E., Shaw, N., Decleer, K., & Dixon, K. W. (2019). International principles and standards for the practice of ecological restoration. Second edition. Restoration Ecology, 27(S1), S1–S46. https://doi.org/10.1111/rec.13035
García-Alanís, L. C. (1997). Estudio fenológico y de crecimiento de once especies leñosas del matorral espinoso tamaulipeco en Linares, Nuevo León, México [Tesis de Maestría en Ciencias Forestales, Universidad Autónoma de Nuevo León]. Repositorio universitario UANL. http://eprints.uanl.mx/7770/1/1020120181.PDF
Gelmi-Candusso, T. A., & Hämäläinen, A. M. (2019). Seeds and the city: the interdependence of zoochory and ecosystem dynamics in urban environments. Frontiers in Ecology and Evolution, 7, Article 41. https://doi.org/10.3389/fevo.2019.00041
Hoefer, W., Gallagher, F., Hyslop, T., Wibbelt, T. J., & Ravit, B. (2016). Environmental reviews and case studies: Unique landfill restoration designs increase opportunities to create urban open space. Environmental Practice, 18(2), 106-115. https://doi.org/10.1017/S1466046616000090
Instituto Nacional de Estadística, Geografía e Informática. (1976). Carta uso del suelo y vegetación. Apodaca, escala 1:50 000, Clave G14C16 (Cartas de Uso del Suelo y Vegetación). Instituto Nacional de Estadística, Geografía e Informática. https://www.inegi.org.mx/app/biblioteca/ficha.html?upc=702825656348&utm
Instituto Nacional de Estadística, Geografía e Informática. (2002). Condiciones geográficas y medio ambiente natural de la zona metropolitana. En Instituto Nacional de Estadística, Geografía e Informática (Ed.), Estadísticas del medio ambiente de la zona metropolitana de Monterrey (pp. 15-19). Instituto Nacional de Estadística y Geografía. https://www.inegi.org.mx/contenidos/productos/prod_serv/contenidos/espanol/bvinegi/productos/historicos/181/702825480486/702825480486_5.pdf
Jiménez-Pérez, J., Jiménez-Quintana, P., Alanís-Rodríguez, E., Martínez-Adriano, C. A., Mora-Olivo, A., & Rubio-Camacho, E. (2025). Estructura del arbolado urbano en parques y calzadas de San Pedro Garza García, México. Revista Forestal Mesoamericana Kurú, 22(51), 22-32. https://doi.org/10.18845/rfmk.v22i51.8059
Jiménez-Pérez, J., Sandoval-García, R., Alanís-Rodríguez, E., Yerena-Yamallel, J. I., & Aguirre-Calderón, O. A. (2022). Dinámica de cambio en ecosistemas urbanos y periurbanos en el área metropolitana de Monterrey, México. Revista Cubana de Ciencias Forestales, 10(3), 278-291. https://dialnet.unirioja.es/servlet/articulo?codigo=9539664
Johnson, A. L., Borowy, D., & Swan, C. M. (2018). Land use history and seed dispersal drive divergent plant community assembly patterns in urban vacant lots. Journal of Applied Ecology, 55(1), 451-460. https://doi.org/10.1111/1365-2664.12958
Jurado, E., Estrada, E., & Mole s̀, A. (2001). Characterizing plant attributes with particular emphasis on seeds in Tamaulipan thornscrub in semi-arid Mexico. Journal of Arid Environments, 48(3), 309-321. https://doi.org/10.1006/jare.2000.0762
Jurado, E., García, J. F., Flores, J., & Estrada, E. (2006). Leguminous seedling establishment in Tamaulipan thornscrub of northeastern Mexico. Forest Ecology and Management, 221(1-3), 133-139. https://doi.org/10.1016/j.foreco.2005.09.011
Kim, K. D., & Lee, E. J. (2005). Soil seed bank of the waste landfills in South Korea. Plant and Soil, 271(1), 109-121. https://doi.org/10.1007/s11104-004-2159-2
Kisvarga, S., Horotán, K., Neményi, A., Jana, T., Istvánfi, Z., & Orlóci, L. (2025). The ecology of urban vegetation: Trade-offs, stressors, and adaptive strategies. Environmental and Sustainability Indicators, 28, Article 100887. https://doi.org/10.1016/j.indic.2025.100887
Ma, M., Collins, S. L., Ratajczak, Z., & Du, G. (2021). Soil seed banks, alternative stable state theory, and ecosystem resilience. BioScience, 71(7), 697-707. https://doi.org/10.1093/biosci/biab011
Mann, H. B., & Whitney, D. R. (1947). On a test of whether one of two random variables is stochastically larger than the other. The Annals of Mathematical Statistics, 18(1), 50-60. https://www.jstor.org/stable/2236101
Martínez-Adriano, C. A., Jurado, E., Flores, J., Estrada-Castillon, E., & Gonzalez-Rodriguez, H. (2021). Effect of induced warming on seedling emergence of Tamaulipan thornscrub at northeastern Mexico. Flora, 285, Article 151965. https://doi.org/10.1016/j.flora.2021.151965
Mendes, S. B., Olesen, J. M., Nogales, M., Marrero, P., Romero, J., Nieves, C., & Heleno, R. (2025). Urbanization of seed dispersal networks. Conservation Biology, 39(6), Article e70097. https://doi.org/10.1111/cobi.70097
Oksanen, J., Simpson, G. L., Blanchet, F. G., Kindt, R., Legendre, P., Minchin, P. R., O'Hara, R. B., Solymos, P., Stevens, M. H. H., Szoecs, E., Wagner, H., Barbour, M., Bedward, M., Bengtsson, H., Bolker, B., Borcard, D., Borman, T., Carvalho, G., Chirico, M., … & Weedon, J. (2026). vegan: Community Ecology Package (version 2.7-6) [Computer software]. Comprehensive R Archive Network. https://doi.org/10.32614/CRAN.package.vegan
Pando-Moreno, M., Jurado, E., Castillo, D., Flores, J., & Estrada, E. (2010). Physical crust does not affect soil seed bank. Arid Land Research and Management, 24(3), 263-266. https://doi.org/10.1080/15324981003744966
Pang, C.-C., Lo, W.-F., Yan, R. W.-M., & Hau, B. C.-H. (2020). Plant community composition on landfill sites after multiple years of ecological restoration. Landscape Research, 45(4), 458-469. https://doi.org/10.1080/01426397.2019.1674266
R Core Team. (2026). R: A Language and Environment for Statistical Computing (Version 4.4.1) [Computer software]. R Foundation for Statistical Computing. https://doi.org/10.32614/R.manuals
Rawlinson, H., Dickinson, N., Nolan, P., & Putwain, P. (2004). Woodland establishment on closed old-style landfill sites in N.W. England. Forest Ecology and Management, 202(1-3), 265-280. https://doi.org/10.1016/j.foreco.2004.07.034
Rebele, F., & Lehmann, C. (2016). Twenty years of woodland establishment through natural succession on a sandy landfill site in Berlin, Germany. Urban Forestry & Urban Greening, 18, 182-189. https://doi.org/10.1016/j.ufug.2016.06.006
Robinson, G. R., & Handel, S. N. (1993). Forest restoration on a closed landfill: rapid addition of new species by bird dispersal. Conservation Biology, 7(2), 271-278. https://doi.org/10.1046/j.1523-1739.1993.07020271.x
RStudio Team. (2026). RStudio: Integrated Development Environment for R (Version 2026.04.0+526) [Computer software]. Posit Software, PBC. https://dailies.rstudio.com/version/2026.04.0+526/
Shapiro, S. S., & Wilk, M. B. (1965). An analysis of variance test for normality (complete samples). Biometrika, 52(3-4), 591-611. https://doi.org/10.1093/biomet/52.3-4.591
Smith-Gill, S. J. (1975). Cytophysiological basis of disruptive pigmentary patterns in the leopard frog, Rana pipiens. II. Wild type and mutant cell specific patterns. Journal of Morphology, 146(1), 35-54. https://doi.org/10.1002/jmor.1051460103
Spennemann, D. H. R. (2020). Palms fanning out: a review of the ecological provisioning services provided by Washingtonia filifera and W. robusta in their native and exotic settings. Plant Ecology & Diversity, 13(3-4), 289-324. https://doi.org/10.1080/17550874.2020.1819465
Valdes-Alameda, R., Jurado, E., Flores, J., & Estrada, E. (2023). Banco de semillas del suelo bajo individuos aislados de especies arbóreas del Matorral Espinoso Tamaulipeco. Revista Mexicana de Ciencias Forestales, 14(79), 31-57. https://doi.org/10.29298/rmcf.v14i79.1344
Valdes-Alameda, R., Jurado, E., Flores, J., Pando-Moreno, M., Estrada, E., & Gurvich, D. E. (2021). Densidad de semillas y plántulas de Zanthoxylum fagara en México y Zanthoxylum coco en Argentina: influencia de plantas bajo las cuales ocurren y borde de la vegetación. Botanical Sciences, 99(1), 67-79. https://doi.org/10.17129/botsci.2636
Vincevica-Gaile, Z., Burlakovs, J., Fonteina-Kazeka, M., Wdowin, M., Hanc, E., Rudovica, V., Krievans, M., Grinfelde, I., Siltumens, K., Kriipsalu, M., Aouissi, H. A., Gaagai, A., & Zahoor, M. (2023). Case study-based integrated assessment of former waste disposal sites transformed to green space in terms of ecosystem services and land assets recovery. Sustainability, 15(4), Article 3256. https://doi.org/10.3390/su15043256
Wong, J. T.-F., Chen, X.-W., Mo, W.-Y., Man, Y.-B., Ng, C. W.-W., & Wong, M.-H. (2016). Restoration of plant and animal communities in a sanitary landfill: A 10-year case study in Hong Kong. Land Degradation & Development, 27(3), 490-499. https://doi.org/10.1002/ldr.2402
Xia, S., Zhang, S., Cui, Y., Gao, Z., Song, K., & Da, L. (2024). Spatial variations of soil seed banks in Shanghai’s urban wasteland: a gradient analysis of urbanization effects. PeerJ, 12, Article e18764. https://doi.org/10.7717/peerj.18764
Todos los textos publicados por la Revista Mexicana de Ciencias Forestales –sin excepción– se distribuyen amparados bajo la licencia Creative Commons 4.0 Atribución-No Comercial (CC BY-NC 4.0 Internacional), que permite a terceros utilizar lo publicado siempre que mencionen la autoría del trabajo y a la primera publicación en esta revista.