Revista Mexicana de Ciencias Forestales Vol. 17 (98)
Dasonomía Urbana (2026)
DOI: https://doi.org/10.29298/rmcf.v17i98.1689 Artículo de investigación
Diversidad florística leñosa y arborescente en calles de Puerto Vallarta, Jalisco, México Woody and arborescent floristic diversity in the streets of Puerto Vallarta, Jalisco, Mexico
Jazmin Arechiga1,2, Elisa Bueno-Alvarado1, Tahamara Esquivel2, Karen E. Peña-Joya3, Sandra Quijas1,4* |
Fecha de recepción/Reception date: 13 de mayo de 2026.
Fecha de aceptación/Acceptance date: 13 de agosto de 2026.
_______________________________
1Universidad de Guadalajara, Centro Universitario de la Costa, Laboratorio de Biodiversidad y Servicios Ecosistémicos. México.
2Organización de la Conservación de los Árboles. México.
3Universidad de Guadalajara, Centro Universitario de la Costa, Laboratorio de Ecología, Paisaje y Sociedad. México.
4Universidad de Guadalajara, Centro Universitario de la Costa, Herbario PV. México.
*Autor para correspondencia; correo-e: sandra.qfonseca@academicos.udg.mx
*Corresponding author; e-mail: sandra.qfonseca@academicos.udg.mx
Resumen
El arbolado de alineación de calles proporciona servicios ecosistémicos críticos, pero enfrenta condiciones de estrés que moldean su diversidad y composición. En este estudio se evaluó la diversidad taxonómica del arbolado leñoso y arborescente urbano de Puerto Vallarta mediante censos florísticos, y se analizó la influencia de variables físicas, biológicas y sociales para generar información útil para la planeación y el manejo del bosque urbano. Se utilizaron índices de distintividad taxonómica y de similitud para evaluar la composición de especies y sus relaciones taxonómicas. Se registraron 2 602 individuos pertenecientes a 39 familias, 85 géneros, 100 especies y una categoría infraespecífica (54 nativas y 47 exóticas). Los taxa más abundantes fueron Terminalia catappa, Ficus benjamina y Tabebuia rosea. La distintividad taxonómica de las calles se mantuvo dentro de los valores esperados; sin embargo, la similitud florística respecto a la región a nivel de Bahía de Banderas y la Sierra El Cuale fue inferior a 10 %. El nivel de marginación y la distancia a la montaña se asociaron a la diversidad florística de las calles. Puerto Vallarta alberga una riqueza relevante, presenta evidencias de homogeneización biótica asociada al predominio de taxones exóticos y la baja representatividad de la flora regional nativa.
Palabras claves: Árboles de calles, composición, distintividad taxonómica, especies exóticas, especies nativas, similitud.
Abstract
Street trees provide critical ecosystem services, but stressful conditions shape their diversity and composition. This study evaluated the taxonomic diversity of Puerto Vallarta’s urban woody and arborescent vegetation through floristic surveys and analyzed the influence of physical, biological, and social variables to generate useful information for urban forest planning and management. Taxonomic distinctiveness and similarity indexes were used to evaluate species composition and taxonomic relationships. A total of 2 602 individuals belonging to 39 families, 85 genera, 100 species, and one infraspecific category (54 native and 47 exotic species) were recorded. The most abundant taxa were Terminalia catappa, Ficus benjamina, and Tabebuia rosea. The taxonomic distinctness of the streets remained within expected values; however, the floristic similarity with respect to the region—specifically Bahía de Banderas and the Sierra El Cuale—was less than 10 %. The level of marginalization and distance from the mountain were associated with the floristic diversity of the streets. Puerto Vallarta is home to significant biodiversity and shows evidence of biotic homogenization associated with the predominance of exotic taxa and the low representation of native regional flora.
Keywords: Street trees, composition, taxonomic distinctness, exotic species, native species, similarity.
Introducción
El arbolado urbano se define como el sistema integrado por árboles, arbustos, palmeras y vegetación asociada como hierbas, lianas y suculentas que habitan en zonas urbanas y periurbanas (Hernández-Cavazos et al., 2025; Román-Guillén et al., 2019). Dentro de las ciudades, el arbolado de alineación en calles y aceras constituye un componente significativo de los paisajes urbanos (Román-Guillén et al., 2019) que proveen servicios ecosistémicos críticos, como la regulación térmica que mitiga el efecto de isla de calor, mejora la calidad del aire mediante la remoción de contaminantes gaseosos y material particulado, contribuye a reducir la escorrentía superficial y favorecer la infiltración de agua de lluvia, promueve el bienestar psicológico, reduce el estrés y aumenta la plusvalía de las propiedades (García-Valencia et al., 2025; Jiang et al., 2024; Shams et al., 2020).
No obstante, el arbolado de calles enfrenta condiciones de estrés extremo, como espacio radicular limitado, suelos compactados y contaminados, lo que exige una selección precisa de especies para evitar diservicios como daños a la infraestructura o alergias por polen (Zong et al., 2020).
Valorar la diversidad del arbolado urbano a escala local y regional es imperativo para comprender los procesos socioecológicos que moldean el paisaje urbano (Galle et al., 2021). La diversidad en las ciudades no es aleatoria; está definida por una interacción compleja entre factores biológicos, físicos y socioeconómicos (Falfán & MacGregor-Fors, 2020; Galle et al., 2021). A escala regional, la composición arbórea está influenciada por factores biogeográficos y climáticos que determinan la viabilidad de especies nativas frente a las exóticas (Antunes-Jimenez et al., 2026). A escala local, los gradientes físicos como la altitud y la proximidad a las áreas naturales actúan como filtros ambientales que definen la riqueza y estructura de la comunidad (Falfán & MacGregor-Fors, 2020; Galle et al., 2021; García-Valencia et al., 2025). El desarrollo histórico de la ciudad (efecto de legado) y el nivel socioeconómico de sus residentes (efecto de lujo) han sido identificados como factores que impulsan la desigualdad espacial en la diversidad o cobertura de árboles urbanos (Liu et al., 2026; Martínez-Juárez et al., 2022; Shams et al., 2020). En particular, el efecto de lujo se refiere a que en sectores de mayor poder adquisitivo suele observarse más riqueza y cobertura de plantas, atribuible a una capacidad de inversión alta, mantenimiento de áreas verdes y elección de especies ornamentales (Hope et al., 2003); aunque la evidencia más reciente muestra que este efecto se amplifica en ciudades áridas y con barrios más antiguos, y se reduce en zonas tropicales (Leong et al., 2018).
El estudio del arbolado urbano requiere un enfoque que trascienda el simple conteo de especies e integre una mayor variedad de métricas (Antunes-Jimenez et al., 2026). La riqueza específica por sí sola asume que todas las especies contribuyen equitativamente a la biodiversidad, omitiendo las relaciones evolutivas entre ellas (Moreno et al., 2009).
En este contexto, el Índice de distintividad taxonómica promedio (Δ+) evalúa la complejidad estructural de la comunidad por encima del nivel de especie utilizando la jerarquía linneana como sustituto de la filogenia (Moreno et al., 2009; Pérez-Hernández, 2019). A diferencia de los índices clásicos, la distintividad taxonómica es robusta frente a variaciones en el esfuerzo de muestreo y permite identificar ensambles taxonómicamente empobrecidos o comunidades con historias evolutivas divergentes (Pérez-Hernández, 2019). Como parte de índices y análisis multivariados, la similitud en composición y la abundancia relativa facilitan la detección de dominancias que vulneran la estabilidad del arbolado urbano (Falfán & MacGregor-Fors, 2020). Para fomentar la estabilidad y evitar la sobrerrepresentación de taxones, se suele aplicar la regla 10-20-30, que recomienda no exceder 10 % de una misma especie, 20 % de un mismo género y 30 % de una misma familia (Almeida-Cerino et al., 2024; Shams et al., 2020); con ello se fomenta la resiliencia ante plagas, enfermedades y el cambio climático (Antunes-Jimenez et al., 2026).
La ciudad de Puerto Vallarta, como parte de la región de Bahía de Banderas entre los estados de Jalisco y Nayarit, presenta una flora leñosa y arborescente influenciada por los ecosistemas tropicales de la Sierra Madre del Sur (Gudiño-Cano et al., 2025). A pesar de su importancia turística y ecológica, el arbolado en sus calles y aceras enfrenta presiones por urbanización y daños a la infraestructura (Esquivel & Quijas, 2021). En este sentido, este trabajo surge de la necesidad de tener un inventario actualizado del arbolado urbano de Puerto Vallarta, e identificar cómo el ensamble de especies se integra dentro del contexto regional.
Bajo los escenarios descritos, surge la pregunta: ¿Cómo influyen los factores físicos, biológicos y socioeconómicos locales en la riqueza, composición y distintividad taxonómica del arbolado de calles de la ciudad de Puerto Vallarta, y cómo se integra dicho ensamble en el contexto regional? Para responderla, se plantea el siguiente objetivo: evaluar la diversidad taxonómica leñosa y arborescente en las calles y aceras de Puerto Vallarta mediante censos y análisis multivariados, con el fin de tener una estimación de la riqueza florística leñosa y arborescente, así como marcar una pauta para una mejor planeación y manejo forestal urbano regional.
Materiales y Métodos
Área de estudio
La ciudad de Puerto Vallarta, ubicada en la costa norte del estado de Jalisco, México (Figura 1A), está rodeada de bosque tropical caducifolio y subcaducifolio (Gallardo-Arce et al., 2022), con un gradiente altitudinal de 0 a 150 m un área de 13.4 km2 y 291 839 habitantes (Instituto de Información Estadística y Geográfica de Jalisco [IIEG Jalisco], 2026). Para la selección de sitios, la ciudad se dividió en tres zonas (norte, centro y sur), con el propósito de evitar su concentración en un solo sector. Posteriormente, se seleccionaron tres sitios en cada zona, lo que permitió tener una replicación balanceada del muestreo a lo largo del gradiente urbano y facilitar la comparación de diversidad, riqueza y abundancia de individuos entre los sitios (Figura 1). Asimismo, a cada sitio se le atribuyeron características físicas y sociales (Cuadro 1).
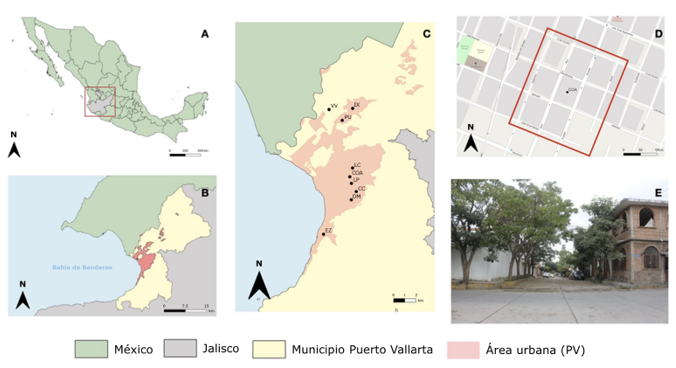
A = Jalisco, México; B = Puerto Vallarta (PV), Jalisco; C = Área urbana (rosa) y área periurbana (amarillo) mostrando la ubicación de los sitios censados (puntos negros); D = Manzanas dentro del sitio; E = Vista de la calle y aceras censadas. IX = Ixtapa; VV = Verde Vallarta; PU = Paseos Universidad II; LC = Lomas del Calvario; COA = Coapinole; LP = La Playita; CC = Cristóbal Colón; EZ = Emiliano Zapata; DM = Del Mar.
Figura 1. Ubicación de los sitios de estudio en la ciudad de Puerto Vallarta en la región de Bahía de Banderas, Jalisco-Nayarit, México.
Cuadro 1. Características físicas y sociales de los sitios en Puerto Vallarta, Jalisco, México.
Código |
Sitios |
Altitud |
Distancia a la montaña (km) |
Calle pavimentada (%) |
Área sitio (km2) |
Nivel marginación |
Longitud acumulada de la calle (km) |
Núm. manzanas |
IX |
Ixtapa |
25.15 |
1.14 |
62 |
0.05 |
Medio |
1.68 |
9 |
VV |
Verde Vallarta |
9.37 |
2.68 |
100 |
0.06 |
Medio |
1.86 |
15 |
PU |
Paseos Universidad II |
17.06 |
0.66 |
100 |
0.05 |
Bajo |
1.21 |
9 |
LC |
Lomas del Calvario |
37.06 |
1.85 |
75 |
0.06 |
Alto |
1.49 |
9 |
COA |
Coapinole |
39.32 |
1.8 |
50 |
0.06 |
Medio |
1.49 |
9 |
LP |
La Playita |
21.05 |
1.71 |
50 |
0.07 |
Medio |
1.40 |
11 |
CC |
Cristóbal Colón |
19.41 |
0.92 |
83 |
0.05 |
Medio |
1.31 |
10 |
EZ |
Emiliano Zapata |
47.12 |
0.25 |
79 |
0.03 |
Medio |
1.72 |
9 |
DM |
Del Mar |
27.72 |
0.79 |
100 |
0.07 |
Bajo |
1.32 |
7 |
Los sitios fueron, principalmente, de uso habitacional, con un área promedio de 0.06 km2 y estuvieron conformados por un intervalo de 7 a 15 manzanas (Figura 1D, Cuadro 1), ya que las características de cada sitio como las limitaciones en el acceso, las condiciones del terreno y la seguridad que presentaba el lugar evitaron que el número de manzanas fuera uniforme. También, se consideró la distancia de los sitios muestreados con respecto a la montaña de la Sierra El Cuale que enmarca a la ciudad de Puerto Vallarta. La distancia se midió con referencia al límite donde inicia la vegetación natural continua de la montaña, esta variable busca representar la proximidad de los sitios urbanos a la vegetación natural como potencial fuente de individuos.
El nivel de marginación no corresponde a un índice oficial, sino a una clasificación cualitativa (alto, medio y bajo), y se determinó a partir de observaciones directas del estado de la infraestructura y mantenimiento del espacio público durante el trabajo de campo (Figura 1E). La categoría “alto” se caracterizó por condiciones precarias en la infraestructura, así como por el poco mantenimiento de los espacios públicos; la categoría “medio” por tener un entorno con condiciones intermedias y la categoría “bajo” correspondió a una infraestructura evidente, así como un buen mantenimiento de los espacios públicos.
Censos de vegetación en las calles
Se realizó el recorrido por las calles que conforman cada sitio, y se consideraron todas aun cuando presentaban características físicas desiguales, por ejemplo, la presencia o ausencia de infraestructura vial como pavimento, banquetas, aceras o arriates. Se recorrieron en promedio 1.5 km, se registraron todos los individuos de árboles, arbustos, palmeras, hierbas y suculentas arborescentes presentes en las calles, se descartaron los individuos leñosos de espacios privados. Cada especie leñosa y arborescente fue definida como nativa o exótica, en función de su origen o distribución potencial. Una especie nativa es aquella que se encuentra dentro de su área de distribución natural u original, de acuerdo con su potencial de dispersión; la especie exótica, o introducida, está fuera de su área de distribución natural (Gudiño-Cano et al., 2025). En este trabajo, las especies exóticas correspondieron a las no nativas de Norte y Centroamérica. El origen de la especie se obtuvo de Plants of the World Online (Royal Botanic Gardens Kew [RBGK], 2025).
Investigación sobre la vegetación regional
Para determinar la diversidad taxonómica de los árboles de Puerto Vallarta, se consideraron los informes florísticos de dos regiones: Bahía de Banderas y Sierra El Cuale (Bravo-Bolaños et al., 2016; Secretaría de Medio Ambiente y Desarrollo Territorial [Semadet], 2016) (Figura 1B). La región de Bahía de Banderas tiene una superficie de 1 407 km2, con una altitud de 0 a 2 000 m, forma parte de la Planicie Costera del Pacífico Mexicano, y comprende los municipios Bahía de Banderas en Nayarit, Puerto Vallarta y Cabo Corrientes en Jalisco.
La vegetación que predomina es el bosque tropical caducifolio y subcaducifolio, con 453 especies, 326 géneros y 103 familias de plantas vasculares (Bravo-Bolaños et al., 2016). La región El Cuale comprende una superficie de 1 214 km2, abarca parte de los municipios Puerto Vallarta, Cabo Corrientes, Talpa de Allende y Mascota, Jalisco. Los tipos de vegetación son bosque tropical subcaducifolio, bosque tropical caducifolio, bosque de pino-encino, bosque mesófilo de montaña, matorral xerófilo (en acantilados), bosque de Byrsonima, Curatella o Crescentia y bosque de galería. Esta región alberga 28 % del total de las especies de flora registradas para el estado de Jalisco, con 2 063 especies, 823 géneros y 163 familias de plantas vasculares (Semadet, 2016).
Análisis de datos
Diversidad taxonómica. La diversidad taxonómica se evaluó a escala local (nueve sitios en Puerto Vallarta) y regional (comparación con Bahía de Banderas y Sierra El Cuale), a partir del Índice de Distintividad Taxonómica Promedio (AvTD; Clarke & Warwick, 1999). Se emplearon matrices de presencia-ausencia vinculadas a una matriz de agregación de cuatro jerarquías taxonómicas (orden, familia, género y especie). La ponderación sistemática siguió los criterios de Clarke y Gorley (2015): especies del mismo género (w1), misma familia pero distinto género (w2), mismo orden pero distinta familia (w3) y distinto orden (w4). Para determinar si la distintividad taxonómica observada, tanto local como regional, difería significativamente de lo esperado por azar, se construyeron embudos de probabilidad mediante 1 000 iteraciones aleatorias, estimando el valor esperado y sus respectivos intervalos de confianza al 95 % (Clarke & Gorley, 2015).
Composición de especies. Se evaluó con el Índice de Jaccard, el cual evalúa las similitudes en la composición de especies entre dos comunidades con relación a las especies compartidas (Moreno, 2001). Para este análisis, se utilizó una matriz de presencia y ausencia de las especies leñosas y arborescentes de los nueve sitios. Para visualizar las similitudes en la composición de los sitios, se realizó un escalamiento multidimensional no métrico (NMDS), el cual se complementa con un análisis clúster para describir agrupaciones a un nivel de corte al 50 % de similitud. El análisis de la composición de árboles a nivel regional consideró una matriz de presencia y ausencia de las especies de árboles de Puerto Vallarta, Bahía de Banderas y Sierra El Cuale. A este nivel, las similitudes se representaron con un análisis clúster (Clarke & Gorley, 2015).
Variables biológicas, físicas y socioeconómicas. Para establecer que variables se asocian a los sitios de Puerto Vallarta (Cuadro 1), se realizó un análisis de coordenadas principales (PCoA) basado en la similitud de Gower (para datos mixtos) y complementado con correlaciones múltiples (Gower, 1971). Este análisis se llevó a cabo con siete variables: biológicas (especies nativas, especies exóticas y abundancia), físicas (altitud y distancia a la montaña) y socioeconómicas (calles pavimentadas, nivel de marginación y número de manzanas). Los análisis se realizaron en el programa PRIMER V7® (Clarke & Gorley, 2015).
Resultados
Diversidad taxonómica
Se registraron 2 602 individuos pertenecientes a 39 familias, 85 géneros, 100 especies y una categoría infraespecífica; de ellas 54 fueron nativas y 47 exóticas (Cuadro 2). Los árboles fueron el hábito más diverso (89 especies), seguido por las palmeras (12) y los arbustos (8). Las especies más abundantes y frecuentes entre sitios fueron Terminalia catappa L. (467), Ficus benjamina L. (191), seguidas por Tabebuia rosea (Bertol.) DC. de origen nativo (150) y Artocarpus heterophyllus Lam. Los sitios evaluados en Puerto Vallarta cumplieron parcialmente la regla 10-20-30; del total de ejemplares censados, ningún género superó más 20 % y ninguna familia representó más de 30 %; sin embargo, a nivel especie T. catappa superó el 10 % sugerido por esta regla, con 18 %.
Cuadro 2. Especies vegetales registradas en las calles de Puerto Vallarta, Jalisco, México.
Orden |
Familia |
Especie |
OR |
HA |
n |
Araucariales |
Araucariaceae |
Araucaria heterophylla (Salisb.) Franco |
E |
Ab |
6 |
Arecales |
Arecaceae |
Adonidia merrillii (Becc.) Becc. |
E |
P |
78 |
Areca catechu L. |
E |
P |
7 |
||
Attalea cohune Mart. |
N |
P |
12 |
||
Caryota mitis Lour. |
E |
P |
3 |
||
Cocos nucifera L. |
E |
P |
95 |
||
Chrysalidocarpus lutescens H. Wendl. |
E |
P |
102 |
||
Hyophorbe lagenicaulis (L. H. Bailey) H. E. Moore |
E |
P |
1 |
||
Phoenix roebelenii O'Brien |
E |
P |
13 |
||
Roystonea regia (Kunth) O. F. Cook |
E |
P |
12 |
||
Sabal mexicana Mart. |
N |
P |
3 |
||
Syagrus romanzoffiana (Cham.) Glassman |
E |
P |
12 |
||
Washingtonia filifera var. robusta (H. Wendl.) Parish |
N |
P |
41 |
||
Asparagales |
Asparagaceae |
Dracaena fragrans (L.) Ker Gawl. |
E |
Ar |
6 |
Yucca gigantea Lem. |
N |
Sa |
20 |
||
Boraginales |
Ehretiaceae |
Ehretia tinifolia L. |
N |
Ab |
12 |
Brassicales |
Caricaceae |
Carica papaya L. |
N |
Ha |
50 |
Moringaceae |
Moringa oleifera Lam. |
E |
Ab |
22 |
|
Caryophyllales |
Nyctaginaceae |
Bougainvillea glabra Choisy |
E |
Ar |
1 |
Cupressales |
Cupressaceae |
Hesperocyparis macrocarpa (Hartw.) Bartel |
N |
Ab |
30 |
Cupressus sempervirens L. |
E |
Ab |
9 |
||
Ericales |
Primulaceae |
Ardisia compressa Kunth |
N |
Ab |
6 |
Fabales |
Fabaceae |
Albizia lebbeck (L.) Benth. |
E |
Ab |
4 |
Bauhinia variegata L. |
E |
Ab |
17 |
||
Caesalpinia pulcherrima (L.) Sw. |
N |
Ar |
1 |
||
Cassia fistula L. |
E |
Ab |
15 |
||
Delonix regia (Bojer ex Hook.) Raf. |
E |
Ab |
19 |
||
Enterolobium cyclocarpum (Jacq.) Griseb. |
N |
Ab |
9 |
||
Gliricidia sepium (Jacq.) Kunth |
N |
Ab |
10 |
||
Hymenaea courbaril L. |
N |
Ab |
2 |
||
Leucaena leucocephala (Lam.) de Wit |
N |
Ab |
19 |
||
Pithecellobium dulce (Roxb.) Benth. |
N |
Ab |
68 |
||
Tamarindus indica L. |
E |
Ab |
14 |
||
Vachellia farnesiana (L.) Wight & Arn. |
N |
Ab |
1 |
||
Gentianales |
Apocynaceae |
Plumeria rubra L. |
N |
Ab |
23 |
Tabernaemontana divaricata (L.) R. Br. ex Roem. & Schult. |
E |
Ar |
1 |
||
Cascabela thevetia (L.) Lippold |
N |
Ab |
14 |
||
Rubiaceae |
Arachnothryx leucophylla (Kunth) Planch. |
N |
Ar |
2 |
|
Morinda citrifolia L. |
E |
Ab |
19 |
||
Lamiales |
Bignoniaceae |
Crescentia alata Kunth |
N |
Ab |
1 |
Jacaranda mimosifolia D. Don |
E |
Ab |
1 |
||
Parmentiera aculeata (Kunth) Seem. |
N |
Ab |
1 |
||
Roseodendron donnell-smithii (Rose) Miranda |
N |
Ab |
61 |
||
Spathodea campanulata P. Beauv. |
E |
Ab |
27 |
||
Tabebuia rosea (Bertol.) DC. |
N |
Ab |
150 |
||
Tecoma stans (L.) Juss. |
N |
Ab |
32 |
||
Lamiaceae |
Clerodendrum quadriloculare (Blanco) Merr. |
E |
Ar |
1 |
|
Vitex mollis Kunth |
N |
Ab |
4 |
||
Tectona grandis L. f. |
E |
Ab |
3 |
||
Oleaceae |
Fraxinus uhdei (Wenz.) Lingelsh. |
N |
Ab |
2 |
|
Verbenaceae |
Duranta erecta L. |
N |
Ar |
7 |
|
Laurales |
Lauraceae |
Persea americana Mill. |
N |
Ab |
7 |
Magnoliales |
Annonaceae |
Annona muricata L. |
N |
Ab |
82 |
Annona purpurea Moc. & Sessé ex Dunal |
N |
Ab |
11 |
||
Malpighiales |
Chrysobalanaceae |
Couepia polyandra (Kunth) Rose |
N |
Ab |
2 |
Euphorbiaceae |
Cnidoscolus aconitifolius (Mill.) I. M. Johnst. |
N |
Ab |
9 |
|
Hura polyandra Baill. |
N |
Ab |
1 |
||
Malpighiaceae |
Byrsonima crassifolia (L.) Kunth |
N |
Ab |
62 |
|
Malpighia emarginata DC. |
N |
Ar |
6 |
||
Malvales |
Bixaceae |
Cochlospermum vitifolium (Willd.) Spreng. |
N |
Ab |
3 |
Malvaceae |
Guazuma ulmifolia Lam. |
N |
Ab |
24 |
|
Hibiscus tiliaceus L. |
E |
Ab |
6 |
||
Pachira aquatica Aubl. |
N |
Ab |
6 |
||
Pseudobombax ellipticum (Kunth) Dugand |
N |
Ab |
11 |
||
Muntingiaceae |
Muntingia calabura L. |
N |
Ab |
4 |
|
Myrtales |
Combretaceae |
Bucida buceras L. C. Wright |
E |
Ab |
37 |
Terminalia catappa L. |
E |
Ab |
467 |
||
Myrtaceae |
Psidium cattleyanum Sabine |
N |
Ab |
2 |
|
Psidium guajava L. |
N |
Ab |
104 |
||
Psidium oligospermum Mart. ex DC. |
N |
Ab |
10 |
||
Syzygium jambos (L.) Alston |
E |
Ab |
37 |
||
Oxalidales |
Oxalidaceae |
Averrhoa carambola L. |
E |
Ab |
33 |
Pinales |
Pinaceae |
Pinus sp. |
N |
Ab |
1 |
Rosales |
Moraceae |
Artocarpus heterophyllus Lam. |
E |
Ab |
111 |
Ficus benjamina L. |
E |
Ab |
191 |
||
Ficus benjamina L. var. variegata |
E |
Ab |
1 |
||
Ficus maclellandii King |
E |
Ab |
3 |
||
Ficus carica L. |
E |
Ab |
1 |
||
Ficus cotinifolia Kunth |
N |
Ab |
4 |
||
Ficus elastica Roxb. ex Hornem. |
E |
Ab |
3 |
||
Ficus insipida Willd. |
N |
Ab |
1 |
||
Ficus lapathifolia Miq. |
N |
Ab |
2 |
||
Ficus microcarpa L. f. |
E |
Ab |
5 |
||
Ficus obtusifolia Kunth |
N |
Ab |
6 |
||
Ficus pertusa L. f. |
N |
Ab |
1 |
||
Urticaceae |
Cecropia obtusifolia Bertol. |
N |
Ab |
5 |
|
Sapindales |
Anacardiaceae |
Anacardium occidentale L. |
N |
Ab |
1 |
Mangifera indica L. |
E |
Ab |
48 |
||
Burseraceae |
Bursera simaruba (L.) Sarg. |
N |
Ab |
12 |
|
Meliaceae |
Azadirachta indica A. Juss. |
E |
Ab |
29 |
|
Melia azedarach L. |
E |
Ab |
28 |
||
Swietenia humilis Zucc. |
N |
Ab |
15 |
||
Rutaceae |
Casimiroa edulis La Llave |
N |
Ab |
1 |
|
Citrus × latifolia Tanaka ex Q. Jiménez |
E |
Ab |
1 |
||
Citrus × tangerina Yu. Tanaka |
E |
Ab |
1 |
||
Citrus aurantium L. |
E |
Ab |
9 |
||
Citrus limon (L.) Osbeck |
E |
Ab |
52 |
||
Sapindaceae |
Melicoccus bijugatus Jacq. |
E |
Ab |
7 |
|
Simaroubaceae |
Simarouba amara Aubl. |
N |
Ab |
41 |
|
Zingiberales |
Musaceae |
Musa × paradisiaca L. |
E |
Ha |
26 |
Strelitziaceae |
Ravenala madagascariensis Sonn. |
E |
Ha |
3 |
OR = Origen; HA = Hábito; n = Número de individuos. E = Exótica; N = Nativa. P = Palmera; Ar = Arbusto; Sa = Suculenta arborescente; Ha = Hierba arborescente; Ab = Árbol.
Por sitio, la riqueza específica varió de 41 a 57 especies, de 21 a 29 géneros y de 11 a 16 familias; la abundancia de 235 a 396 individuos (Cuadro 3). Las especies nativas variaron de 31 a 40 y las exóticas de 12 a 18. La especie exótica Terminalia catappa fue la de mayor abundancia en ocho de los nueve sitios, mientras que Ficus benjamina (exótica) fue la dominante en el sitio Emiliano Zapata.
Cuadro 3. Riqueza y abundancia de especies por sitio en Puerto Vallarta, Jalisco, México.
Sitios |
Total |
Árboles |
Arbustos |
Palmeras |
Nativas |
Exóticas |
||||||||
Ab |
Sp |
Ge |
Fa |
Sp |
Ab |
Sp |
Ab |
Sp |
Ab |
Sp |
Ab |
Sp |
Ab |
|
IX |
235 |
46 |
23 |
14 |
37 |
218 |
4 |
8 |
5 |
9 |
32 |
87 |
14 |
148 |
VV |
253 |
45 |
23 |
13 |
35 |
216 |
2 |
4 |
8 |
33 |
31 |
151 |
14 |
102 |
PU |
396 |
57 |
25 |
16 |
45 |
267 |
4 |
20 |
8 |
109 |
39 |
242 |
18 |
154 |
LC |
255 |
47 |
25 |
12 |
40 |
236 |
1 |
1 |
6 |
18 |
34 |
146 |
13 |
109 |
COA |
270 |
46 |
22 |
13 |
40 |
235 |
2 |
3 |
4 |
32 |
32 |
147 |
14 |
121 |
LP |
278 |
45 |
26 |
13 |
39 |
244 |
3 |
6 |
3 |
28 |
32 |
150 |
13 |
128 |
CC |
349 |
52 |
27 |
11 |
43 |
303 |
3 |
6 |
6 |
40 |
40 |
227 |
12 |
121 |
EZ |
286 |
41 |
21 |
14 |
31 |
205 |
1 |
2 |
9 |
79 |
27 |
114 |
14 |
171 |
DM |
280 |
49 |
29 |
13 |
41 |
246 |
2 |
3 |
6 |
31 |
36 |
196 |
13 |
84 |
Ab = Abundancia; Sp = Especie; Ge = Género; Fa = Familia. IX = Ixtapa; VV = Verde Vallarta; PU = Paseos Universidad II; LC = Lomas del Calvario; COA = Coapinole; LP = La Playita; CC = Cristóbal Colón; EZ = Emiliano Zapata; DM = Del Mar.
Los resultados de la distintividad taxonómica muestran que todos los sitios de Puerto Vallarta se encuentran dentro del embudo de probabilidad, indicando que la diversidad taxonómica de las especies arbóreas de los nueve sitios se ajusta a los valores esperados (Figura 2A). Los sitios Del Mar (AvTD=95.96), Lomas del Calvario (AvTD=95.32), Ixtapa (AvTD=95.44), La Playita (AvTD=94.80) y Cristóbal Colón (AvTD=95.78) presentaron valores de distintividad taxonómica mayores al promedio esperado, lo cual revela que tienen especies de árboles pertenecientes a una mayor variedad de taxones supraespecíficos. Por el contrario, los sitios Emiliano Zapata (AvTD=93.78), Paseos Universidad II (AvTD=94.40) y Verde Vallarta (AvTD=94.52) registraron menor distintividad taxonómica a la esperada. En el caso de la distintividad taxonómica de Coapinole (AvTD=95.00), está justo en el valor promedio esperado, por lo que presenta las especies y taxones supraespecíficos de árboles más representativas para Puerto Vallarta.
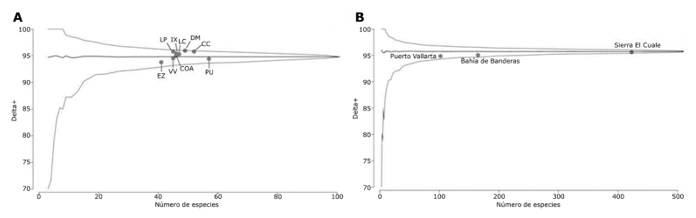
A = Escala local; B = Escala regional. IX = Ixtapa; VV = Verde Vallarta; PU = Paseos Universidad II; LC = Lomas del Calvario; COA = Coapinole; LP = La Playita; CC = Cristóbal Colón; EZ = Emiliano Zapata; DM = Del Mar. La línea horizontal segmentada representa la media esperada y la continua, los límites de confianza (95 %). Los puntos simbolizan valores observados para cada sitio.
Figura 2. Distintividad taxonómica promedio de la vegetación leñosa y arborescente a escala local y escala regional.
A escala regional, Puerto Vallarta (AvTD=94.85) presentó la menor distintividad taxonómica, seguida de Bahía de Banderas (AvTD=95.60) y la Sierra El Cuale (AvTD=95.05) (Figura 2B). Destacó que la distintividad taxonómica de CC correspondió justo el valor promedio esperado, por lo que tiene las especies y taxones arbóreos más representativos de la región, además del mayor número de especies.
Composición de especies
A escala local, los resultados del NMDS evidencian semejanzas en la composición de especies de árboles de los distintos sitios evaluados (Figura 3A). Se muestra una agrupación y dos entidades aisladas a un nivel de similitud de 50 %. El grupo observado está conformado por siete sitios (LC, IX, CC, VV, PU, LP, COA). Esto evidencia que mantienen especies arbóreas compartidas; los sitios DM y EZ tienen una composición arbórea distinta.
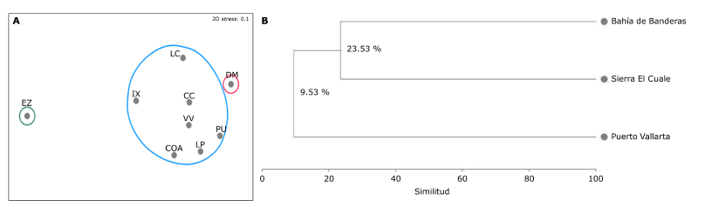
A = Escala local; B = Escala regional. IX = Ixtapa; VV = Verde Vallarta; PU = Paseos Universidad II; LC = Lomas del Calvario; COA = Coapinole; LP = La Playita; CC = Cristóbal Colón; EZ = Emiliano Zapata; DM = Del Mar. Los círculos representan los grupos identificados a un nivel de similitud de 50 %.
Figura 3. Escalamiento multidimensional no métrico (NMDS) que analiza la similitud de especies de árboles en Puerto Vallarta (A) y análisis de clasificación de la similitud de especies de árboles en Bahía de Banderas (B).
A escala regional, se determinó que la composición de especies de árboles de Puerto Vallarta, Bahía de Banderas y Sierra El Cuale es diferente (Figura 3B). Bahía de Banderas y Sierra El Cuale presentan una similitud menor a 25 % y Puerto Vallarta mantiene una similitud inferior a 10 % con relación a las otras dos regiones; por lo que su composición de especies arbóreas es más distinta.
Factores que afectan la riqueza y composición de especies leñosas y arborescentes en las calles
A partir del análisis PCoA se obtuvo una variación explicada acumulada de 75.4 % en los dos primeros ejes (Figura 4). De manera particular, se muestra que los sitios LC, COA, LP e IX se ubican en los valores positivos del eje 1 en donde las variables nivel de marginación (0.45), distancia a la montaña (0.33), altitud (0.18) y número de manzanas (0.19) tienen mayor correlación. Por otro lado, los sitios que se localizan hacia valores negativos del eje 1 (PU, CC y DM), presentaron una mayor correlación que las abundancias de las especies de árboles (-0.48), el número de especies nativas (-0.38), especies exóticas (-0.35) y calles pavimentadas (-0.33). En los valores positivos del eje 2 se encuentra el sitio VV y se asocia al número de manzanas (0.59) y hacia valores negativos se sitúa EZ donde la variable con mayor correlación es la altitud (-0.60).
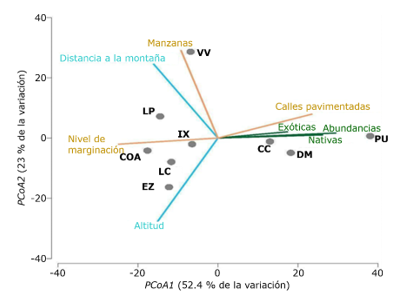
IX = Ixtapa; VV = Verde Vallarta; PU = Paseos Universidad II; LC = Lomas del Calvario; COA = Coapinole; LP = La Playita; CC = Cristóbal Colón; EZ = Emiliano Zapata; DM = Del Mar.
Figura 4. Análisis de coordenadas principales (PCoA) para los sitios de Puerto Vallarta y su relación con las variables biológicas (color verde), físicas (color azul) y socioeconómicas (color naranja).
Discusión
Los resultados muestran que las calles de la ciudad de Puerto Vallarta presentan una riqueza florística importante. El registro de 100 especies y una categoría infraespecífica de leñosas y arborescentes (85 géneros y 39 familias) en Puerto Vallarta representa una riqueza moderadamente alta, que supera los registros de 67 especies en Morelia (Madrigal-Sánchez & Gomez-Peralta, 2007) o los 75 taxa en Puebla (Martínez-Juárez et al., 2022), y son cercanos a los valores de ciudades con climas tropicales húmedos como Tapachula (130 especies; Almeida-Cerino et al., 2024), Tuxtla Gutiérrez (114 especies; Román-Guillén et al., 2019) y Xalapa (140 especies; Falfán & MacGregor-Fors, 2016).
No obstante, la dominancia de especies exóticas como T. catappa (467 individuos) y F. benjamina (191) es un fenómeno recurrente en estudios sobre arbolado urbano en México (Almeida-Cerino et al., 2024; Falfán & MacGregor-Fors, 2016; García-Valencia et al., 2025; Román-Guillén et al., 2019). Esta sobrerrepresentación de una especie explica por qué la regla 10-20-30 (Almeida-Cerino et al., 2024; Shams et al., 2020) no se ajusta completamente a los resultados del presente estudio. La preferencia por taxones exóticos o introducidos responde a un patrón asociado a la oferta limitada en los viveros comerciales y a la poca disponibilidad de flora nativa regional, así como al crecimiento rápido y valor ornamental; aunque a menudo ignora sus efectos negativos en la infraestructura urbana, como el levantamiento de banquetas asociado a las raíces agresivas de las especies de Ficus (Esquivel & Quijas, 2021; Ramos-Palacios, 2019).
En Puerto Vallarta, se observa un equilibrio notable con 54 especies nativas registradas, lo que difiere de otras urbes donde las especies exóticas leñosas y arborescentes predominan abrumadoramente, como en Tuxtla Gutiérrez con 74 % de individuos introducidos (Román-Guillén et al., 2019). La abundancia de la nativa Tabebuia rosea (150) y la presencia de especies de uso comestible como Artocarpus heterophyllus (111) reflejan una integración de la flora regional, alta capacidad de propagación y de crecimiento en condiciones adversas. La preferencia local por taxones que brindan servicios ecosistémicos, es similar a lo observado en ciudades amazónicas, donde 52 % de los árboles son frutales (Antunes-Jimenez et al., 2026).
La baja similitud composicional de Puerto Vallarta con Bahía de Banderas y Sierra El Cuale subraya un proceso de homogeneización biótica urbana, en la cual el diseño del paisaje privilegia especies generalistas o comerciales sobre la flora local del bosque tropical subcaducifolio (Falfán & MacGregor-Fors, 2020). Aunque Puerto Vallarta presenta la menor distintividad taxonómica regional, el hecho de que sus manzanas se ubiquen dentro del embudo de probabilidad indica que la diversidad taxonómica observada se ajusta a los valores esperados para la riqueza de especies presentes.
Zonas como Del Mar y Lomas del Calvario destacan por albergar taxones pertenecientes a una mayor variedad de linajes supraespecíficos, lo que sugiere una estructura comunitaria más resiliente frente a plagas o cambios ambientales (Almeida-Cerino et al., 2024). Por el contrario, la menor distintividad en Emiliano Zapata podría indicar una saturación de especies cercanamente emparentadas (como el uso masivo de diversas especies de Ficus), lo cual es un factor de vulnerabilidad fitosanitaria (Román-Guillén et al., 2019). La zona Cristóbal Colón se perfila como el modelo de representatividad para la ciudad, al equilibrar la riqueza de especies con un valor de distintividad promedio (94.81).
Se confirma que la vegetación de calles no se distribuye al azar, sino que está moldeada por gradientes socioeconómicos y biofísicos. En particular, el nivel de marginación se asocia con la variación de riqueza y composición, posiblemente por un efecto de lujo (Hope et al., 2003); aunque este se atenúa en climas tropicales (Leong et al., 2018). En sitios como Paseos Universidad II (PU) y Cristóbal Colón (CC), la mayor correlación con la abundancia de árboles y especies nativas sugiere un manejo más activo o mejores condiciones de infraestructura, como las calles pavimentadas, que facilitan la inversión y el mantenimiento del arbolado de alineación (Martínez-Juárez et al., 2022).
Las variables distancia a la montaña y altitud en sitios como Lomas del Calvario (LC) e Ixtapa (IX) indican que la cercanía a remanentes de vegetación natural (bosque tropical subcaducifolio) influye en la composición urbana, probablemente a través de la dispersión natural de semillas o la preservación de individuos preexistentes a la urbanización (Falfán & MacGregor-Fors, 2020; Ramos-Palacios, 2019). Este patrón coincide con estudios que señalan la importancia de los bosques periurbanos como reservorios de diversidad para la ciudad (Hernández-Cavazos et al., 2025).
Las implicaciones de los resultados para la ciudad de Puerto Vallarta, que forma parte de la región de Bahía de Banderas, Nayarit-Jalisco, exigen una reorientación estratégica de la planeación y manejo de sus espacios verdes urbanos. Dado el auge turístico y el crecimiento poblacional acelerado, se ha documentado una pérdida masiva de especies nativas debido a la urbanización desordenada y la destrucción de dunas costeras (Gallardo-Arce et al., 2022). Es imperativo transitar hacia un modelo que priorice la riqueza local, que aproveche el potencial ornamental de las especies registradas en el municipio (Gudiño-Cano et al., 2025) y la bahía (Bravo-Bolaños et al., 2016), muchas de ellas endémicas o bajo protección especial. El manejo debe enfocarse en la sustitución de especies exóticas invasoras por taxones nativos regionales, como T. rosea, que garanticen la conectividad con remanentes de bosque tropical subcaducifolio y vegetación de zonas riparias (Mora-Santacruz et al., 2006).
Los resultados aportan evidencia para fortalecer la planeación y manejo del arbolado urbano en Puerto Vallarta, al responder a problemáticas y contextos socioambientales y de infraestructura específicos de la ciudad, como el uso indiscriminado de determinadas especies. En este contexto, se resalta la importancia de incrementar la diversidad taxonómica y funcional mediante la selección y ubicación estratégica de especies nativas regionales con características homólogas a las de aquellas utilizadas de manera excesiva. Esa estrategia contribuiría a contrarrestar la disminución de la distintividad taxonómica y maximizar la generación de servicios ecosistémicos, como la regulación térmica, la captura de contaminantes y el refugio para la biodiversidad, los cuales son mayores en comunidades arbóreas con más diversidad estructural y funcional.
Conclusiones
Las calles de Puerto Vallarta albergan 100 especies y una categoría intraespecífica, 85 géneros y 39 familias, con una distintividad taxonómica local ajustada a los valores esperados. Sin embargo, la dominancia de especies exóticas como Terminalia catappa y Ficus benjamina exceden el límite de la regla 10-20-30, y la similitud composicional con la flora regional (Bahía de Banderas, Sierra El Cuale) es menor a 10 %, lo que evidencia un proceso de homogeneización biótica. El nivel de marginación y la distancia a la montaña se asocian con la variación en la riqueza y composición entre sitios. Estos hallazgos señalan la necesidad de priorizar especies nativas regionales en la planeación del arbolado urbano de la ciudad.
Conflicto de interés
Las autoras declaran no tener conflicto de intereses.
Contribución por autor
Jazmin Arechiga: concepción de la investigación, recorridos de campo, análisis de la información, generación de figuras y cuadros; Elisa Bueno-Alvarado: concepción de la investigación, recorridos de campo, análisis de la información, generación de figuras y cuadros; Tahamara Esquivel: recorridos de campo, análisis de la información, generación de figuras y cuadros; Karen E. Peña-Joya: análisis de datos y redacción de resultados, generación de figuras; Sandra Quijas: concepción de la investigación, recorridos de campo, integración y redacción del primer borrador del manuscrito. Todos los autores revisaron y aprobaron la versión final del manuscrito.
Referencias
Almeida-Cerino, C. M., Bertolini, V., & Martínez-Trinidad, T. (2024). Estructura y diversidad florística en áreas verdes urbanas de la ciudad de Tapachula, Chiapas, México. Revista Mexicana de Ciencias Forestales, 15(83), 131-154. https://doi.org/10.29298/rmcf.v15i83.1457
Antunes-Jimenez, L., Barros-Lobato-Cambraia, T., Baia-Furtado, E., Campelo, W., Meneses-Silvestre de Sousa, S., Freire, L. M., Trujillo, L. R., Pereira-Lima, R. A., & Toledo, J. J. (2026). Patterns of tree species abundance and diversity on urban sidewalks in Macapá, Amapá, Brazil. Ecological Research, 41(2), Article e70059. https://doi.org/10.1111/1440-1703.70059
Bravo-Bolaños, O., Sánchez-González, A., de Nova-Vázquez, J. A., & Pavón-Hernández, N. P. (2016). Composición y estructura arbórea y arbustiva de la vegetación de la zona costera de Bahía de Banderas, Nayarit, México. Botanical Sciences, 94(3), 603-623. https://doi.org/10.17129/botsci.461
Clarke, K. R., & Gorley, R. N. (2015). PRIMER v7: User manual/tutorial. PRIMER-e Learning Hub. https://learninghub.primer-e.com/books/primer-v7-user-manual-tutorial
Clarke, K. R., & Warwick, R. M. (1999). The taxonomic distinctness measure of biodiversity: weighting of step lengths between hierarchical levels. Marine Ecology Progress Series, 184, 21-29. https://doi.org/10.3354/meps184021
Esquivel, T., & Quijas, S. (2021). Daño a la infraestructura (pavimento) causado por el arbolado urbano en Puerto Vallarta, Jalisco. Revista Mexicana de Ciencias Forestales, 12(68), 178-201. https://doi.org/10.29298/rmcf.v12i68.1166
Falfán, I., & MacGregor-Fors, I. (2016). Woody neotropical streetscapes: a case study of tree and shrub species richness and composition in Xalapa. Madera y Bosques, 22(1), 95-110. https://doi.org/10.21829/myb.2016.221479
Falfán, I., & MacGregor-Fors, I. (2020). Mismatching streetscapes: Woody plant composition across a Neotropical city. Urban Ecosystems, 24, 265-274. https://doi.org/10.1007/s11252-020-01033-y
Gallardo-Arce, B. G., Morales-Hernández, J. C., Frausto-Martínez, O., Bravo-Olivas, M. L., & Carrillo-González, F. M. (2022). Cambio de cobertura vegetal y uso de suelo generado por actividades agrícolas en el municipio de Bahía de Banderas, Nayarit, México. Acta Universitaria, 32, 1-18. https://doi.org/10.15174/au.2022.3618
Galle, N. J., Halpern, D., Nitoslawski, S., Duarte, F., Ratti, C., & Pilla, F. (2021). Mapping the diversity of street tree inventories across eight cities internationally using open data. Urban Forestry & Urban Greening, 61, Article 127099. https://doi.org/10.1016/j.ufug.2021.127099
García-Valencia, A., Sánchez-Sánchez, O., Ramírez-Soto, A., & Ramos-Palacios, C. R. (2025). Diagnóstico y servicios ecosistémicos del arbolado de alineación en Xalapa, Veracruz, México. Polibotánica, (59), 159-180. https://doi.org/10.18387/polibotanica.59.10
Gower, J. C. (1971). A general coefficient of similarity and some of its properties. Biometrics, 27, 857-871. https://doi.org/10.2307/2528823
Gudiño-Cano, A. K., De-Nova, J. A., Ortiz, E., Vargas-Ponce, O., Carrillo-Reyes, P., Munguía-Lino, G., Villaseñor, J. L., & Ruiz-Sánchez, E. (2025). Inventario de la flora vascular de Jalisco, México. Botanical Sciences, 103(1), 176-206. https://doi.org/10.17129/botsci.3499
Hernández-Cavazos, M. C., Alanís-Rodríguez, E., Molina-Guerra, V. M., Jiménez-Pérez, J., Aguirre-Calderón, O. A., & Cuellar, L. G. (2025). Tendencias en la investigación de bosques urbanos de México: Una revisión de la literatura. E-CUCBA, 12(26), 1-10. https://doi.org/10.32870/e-cucba.vi26.395
Hope, D., Gries, C., Zhu, W., Fagan, W. F., Redman, C. L., Grimm, N. B., Nelson, A. L., Martin, C., & Kinzig, A. (2003). Socioeconomics drive urban plant diversity. Proceedings of the National Academy of Sciences, 100(15), 8788-8792. https://doi.org/10.1073/pnas.1537557100
Instituto de Información Estadística y Geográfica de Jalisco. (2026). Puerto Vallarta Cuadernillo municipal. Agosto 2026 [Libro blanco]. Gobierno del Estado de Jalisco. https://iieg.jalisco.gob.mx/acervo/portal/cuadernillos/2026/67_puerto_vallarta_cuadernillo_municipal_2026.pdf
Jiang, Y., Liu, D., Ren, L., Grekousis, G., & Lu, Y. (2024). Tree abundance, species richness, or species mix? Exploring the relationship between features of urban street trees and pedestrian volume in Jinan, China. Urban Forestry & Urban Greening, 95, Article 128294. https://doi.org/10.1016/j.ufug.2024.128294
Leong, M., Dunn, R. R., & Trautwein, M. D. (2018). Biodiversity and socioeconomics in the city: a review of the luxury effect. Biology Letters, 14(5), Article 20180082. https://doi.org/10.1098/rsbl.2018.0082
Liu, D., Lu, Y., & Jiang, Y. (2026). Exploring the environmental justice of street tree provision: Adding biodiversity to automatic assessment of street-level greenery. Urban Forestry & Urban Greening, 115, Article 129184. https://doi.org/10.1016/j.ufug.2025.129184
Madrigal-Sánchez, X., & Gómez-Peralta, M. (2007). Árboles de las áreas urbanas y suburbanas de Morelia, Michoacán, México. Biológicas, 9, 12-22.
Martínez-Juárez, G., Rodríguez-Trejo, D. A., Granados-Sánchez, D., Mohedano-Caballero, L., & Villanueva-Morales, A. (2022). Descripción del arbolado de alineación de la ciudad de Puebla por grado de marginación y vialidad. Revista Mexicana de Ciencias Forestales, 13(70), 85-111. https://doi.org/10.29298/rmcf.v13i70.830
Mora-Santacruz, A., Valdez-Hernández, J. I., Ángeles-Pérez, G., Musálem-Santiago, M. A., & Vaquera-Huerta, H. (2006). Establecimiento y desarrollo de plántulas de Tabebuia rosea (Bignoniaceae) en una selva subcaducifolia manejada de la costa Pacífica de México. Revista de Biología Tropical, 54(4), 1215-1225. https://doi.org/10.15517/rbt.v54i4.3099
Moreno, C. E. (2001). Métodos para medir la biodiversidad. Programa Iberoamericano de Ciencia y Tecnología para el Desarrollo, Oficina Regional de Ciencia y Tecnología para América Latina y el Caribe, UNESCO, y Sociedad Entomológica Aragonesa. https://www.researchgate.net/publication/304346666_Metodos_para_medir_la_biodiversidad
Moreno, C. E., Castillo-Campos, G., & Verdú, J. R. (2009). Taxonomic diversity as complementary information to assess plant species diversity in secondary vegetation and primary tropical deciduous forest. Journal of Vegetation Science, 20(5), 935-943. https://doi.org/10.1111/j.1654-1103.2009.01094.x
Pérez-Hernández, C. X. (2019). Distintividad taxonómica: Evaluación de la diversidad en la estructura taxonómica en los ensambles. En C. E. Moreno (Ed.), La biodiversidad en un mundo cambiante: Fundamentos teóricos y metodológicos para su estudio(pp. 285-306). Universidad Autónoma del Estado de Hidalgo. https://www.researchgate.net/publication/339150175_Distintividad_taxonomica_Evaluacion_de_la_diversidad_en_la_estructura_taxonomica_en_los_ensambles
Ramos-Palacios, C. R. (2019). Guía del arbolado y otras formas vegetales en situación de banqueta. Ciudad de San Luis Potosí (1ra ed.). Universidad Autónoma de San Luis Potosí, Secretaría de Ecología y Gestión Ambiental. https://ambiental.uaslp.mx/storage/imagenes/introduccion/Guiadelarbolado_y_otrasformasvegetales.pdf
Román-Guillén, L. M., Orantes-García, C., del Carpio-Penagos, C. U., Sánchez-Cortés, M. S., Ballinas-Aquino, M. L., & Farrera Sarmiento, Ó. (2019). Diagnóstico del arbolado de alineación de la ciudad de Tuxtla Gutiérrez, Chiapas. Madera y Bosques, 25(1), Artículo e2511559. https://doi.org/10.21829/myb.2019.2511559
Royal Botanic Gardens Kew. (2025). Plants of the World Online [Database]. Royal Botanic Gardens Kew. https://powo.science.kew.org/
Secretaría de Medio Ambiente y Desarrollo Territorial. (2016). Estudio Técnico Justificativo para el establecimiento del Área Estatal de Protección Hidrológica Sierra “El Cuale” Jalisco [Libro blanco]. Secretaría de Medio Ambiente y Desarrollo Territorial. https://siga.jalisco.gob.mx/comunicacionsemadet/SIERRACUALE.pdf
Shams, Z. I., Shahid, M., Nadeem, Z., Naz, S., Raheel, D., Aftab, D., Fraz, T. R., & Roomi, M. S. (2020). Town socio-economic status and road width determine street tree density and diversity in Karachi, Pakistan. Urban Forestry & Urban Greening, 47, Article 126473. https://doi.org/10.1016/j.ufug.2019.126473
Zong, H., Yao, M., Tang, Y., & Chen, H. (2020). Assessing the composition, diversity, and allergenic risk of street trees in Qingyang District of Chengdu City. Urban Forestry & Urban Greening, 54, Article 126747. https://doi.org/10.1016/j.ufug.2020.126747
Todos los textos publicados por la Revista Mexicana de Ciencias Forestales –sin excepción– se distribuyen amparados bajo la licencia Creative Commons 4.0 Atribución-No Comercial (CC BY-NC 4.0 Internacional), que permite a terceros utilizar lo publicado siempre que mencionen la autoría del trabajo y a la primera publicación en esta revista.