Revista Mexicana de Ciencias Forestales Vol. 17 (98)
Dasonomía Urbana (2026)
DOI: https://doi.org/10.29298/rmcf.v17i98.1687 Artículo de investigación
Influencia del tamaño del parque sobre la estructura y diversidad del arbolado urbano en Monterrey, Nuevo León, México Influence of park size on the structure and diversity of urban trees in the city of Monterrey, Nuevo León, Mexico
Homero Gárate-Escamilla1, Melvin Isac De La Rosa-Estrada1, Aldo Tovar-Cárdenas1*, José Israel Yerena-Yamallel1, Pablo Marroquín-Morales2 |
Fecha de recepción/Reception date: 8 de mayo de 2026.
Fecha de aceptación/Acceptance date: 21 de julio de 2026.
_______________________________
1Universidad Autónoma de Nuevo León, Facultad de Ciencias Forestales. México.
2Universidad Autónoma de Chiapas, Facultad de Ciencias Agrícolas. México.
*Autor para correspondencia; correo-e: aldo_tc11@hotmail.com
*Corresponding author; e-mail: aldo_tc11@hotmail.com
Resumen
El arbolado urbano aporta servicios ecosistémicos relevantes en las ciudades; sin embargo, su estructura y diversidad pueden estar condicionadas más por el manejo que por procesos ecológicos naturales. El objetivo de este estudio fue evaluar la estructura, diversidad y dominancia del arbolado urbano en parques de distinto tamaño en Monterrey, México, además de determinar la influencia del tamaño del parque. Se evaluaron nueve parques urbanos clasificados en tres categorías de tamaño: pequeños, medianos y grandes. En cada uno se establecieron parcelas circulares que representaron 10 % de su superficie. Se registraron variables estructurales y se calcularon los índices de Margalef, Shannon-Wiener, complemento de Simpson e Índice de Valor de Importancia (IVI). Las diferencias entre categorías se analizaron mediante la prueba de Kruskal-Wallis. Se registraron 243 individuos arbóreos. No se detectaron diferencias significativas entre las categorías de tamaño de los parques en la mayoría de las variables evaluadas, incluyendo riqueza de especies, número de familias e índices de diversidad. La densidad de individuos fue la única variable con diferencias significativas, y valores más altos en parques pequeños. El análisis del IVI evidenció la dominancia de un número reducido de especies, particularmente Fraxinus americana y Quercus virginiana. Los resultados sugieren que, en los parques evaluados, las prácticas de manejo y la selección de especies tienen mayor influencia sobre la estructura del arbolado urbano que el tamaño del parque.
Palabras clave: Dominancia ecológica, ecología urbana, Índice de Valor de Importancia, infraestructura verde, manejo urbano, selección de especies.
Abstract
Urban trees provide important ecosystem services in cities; however, their structure and diversity may be influenced more by management practices than by natural ecological processes. The objective of this study was to evaluate the structure, diversity, and dominance of urban trees in parks of different sizes in Monterrey, Mexico, and to assess the influence of park size. Nine urban parks were classified into three size categories: small, medium, and large. Circular plots representing 10 % of the area of each park were established. Structural variables were recorded, and the Margalef, Shannon-Wiener, Simpson's complement, and Importance Value Index (IVI) were calculated. Differences among park size categories were analyzed using the Kruskal-Wallis test. A total of 243 tree individuals were recorded. No statistically significant differences were detected among park size categories for most of the variables evaluated, including species richness, number of families, and diversity indexes. Tree density was the only variable that differed significantly, with higher values in small parks. The IVI analysis revealed the dominance of a small number of species, particularly Fraxinus americana and Quercus virginiana. Results suggest that, in the parks evaluated, management practices and species selection may exert a greater influence than park size on the structure of the urban tree community.
Keywords: Ecological dominance, urban ecology, Importance Value Index, green infrastructure, urban management, species selection.
Introducción
El crecimiento de las ciudades ha transformado los ecosistemas naturales, y ha dado lugar a los ambientes urbanos donde la vegetación se establece bajo condiciones modificadas por la actividad humana (Grimm et al., 2008). En este contexto, los parques urbanos representan espacios clave dentro de la infraestructura verde, al desempeñar funciones ecológicas, sociales y paisajísticas, además de contribuir a la regulación microclimática, la captura de carbono y el bienestar de la población (Nowak et al., 2013; Tzoulas et al., 2007).
A diferencia de los ecosistemas naturales, en los que la composición y diversidad de las comunidades vegetales están determinadas por procesos ecológicos como la dispersión, la competencia y las condiciones ambientales; los sistemas urbanos se caracterizan por una fuerte influencia del manejo antrópico (Anderson et al., 2023; Aronson et al., 2016). La selección de especies, los programas de reforestación y las prácticas de mantenimiento influyen directamente en la estructura del arbolado urbano, y generan patrones distintos a los observados en ambientes naturales (Alanís-Rodríguez et al., 2023; Sjöman et al., 2018).
En este sentido, aunque la relación especie-área establece que espacios de mayor tamaño tienden a albergar una riqueza de especies alta (Drakare et al., 2006), en ambientes urbanos ese patrón puede debilitarse debido al predominio de decisiones de diseño y manejo (Chang et al., 2021; Kowarik, 2011). En consecuencia, parques de distinta superficie presentan valores similares de diversidad, al estar sujetos a criterios de arborización homogéneos (Aronson et al., 2016).
Diversos estudios han documentado que los sistemas urbanos suelen caracterizarse por la presencia recurrente de un conjunto reducido de especies arbóreas en diferentes áreas verdes (McKinney, 2006; Williams et al., 2009; Yang et al., 2023). Patrón que se asocia con el uso frecuente de especies ornamentales, su disponibilidad en viveros y la implementación de prácticas de manejo estandarizadas; factores que pueden influir en la estructura y diversidad del arbolado urbano, independientemente del tamaño de los parques (Kendal et al., 2012).
En Monterrey y su zona metropolitana, los parques urbanos representan espacios relevantes para la infraestructura verde y el entorno urbano. Su arbolado está conformado por especies nativas e introducidas; sin embargo, en años recientes los programas de arborización han incrementado el uso de especies nativas (Alanís-Rodríguez et al., 2023). A pesar de ello, el conocimiento sobre la estructura y diversidad de su arbolado sigue siendo limitado. En particular, no se ha evaluado con claridad si el tamaño de los parques influye en la estructura y diversidad del arbolado urbano o si estos atributos responden, principalmente, a las prácticas de manejo, como se ha descrito en otros contextos urbanos (Beninde et al., 2015; Chang et al., 2021). Determinar la influencia del tamaño del parque sobre esos atributos permitirá generar información útil para la planeación, diseño y manejo de las áreas verdes urbanas, y contribuir así a establecer estrategias de arborización orientadas a promover comunidades arbóreas más diversas y funcionales. Por lo anterior, el presente estudio tuvo como objetivo evaluar la influencia del tamaño del parque sobre la estructura y diversidad del arbolado urbano en parques de Monterrey. Se planteó como hipótesis que los parques de mayor tamaño presentarían una más diversidad arbórea que los parques pequeños, de acuerdo con la relación especie-área descrita para comunidades vegetales.
Materiales y Métodos
Área de estudio
El estudio se realizó en parques urbanos del municipio Monterrey, estado de Nuevo León, ubicado en el noreste de México, a una altitud aproximada de 537 msnm. El municipio forma parte del área metropolitana de la ciudad de Monterrey y se caracteriza por una alta densidad urbana y una red de áreas verdes distribuidas en distintos sectores de la ciudad (Alanís-Rodríguez et al., 2023; Instituto Nacional de Estadística y Geografía [Inegi], 2020).
Selección de sitios y muestreo
El muestreo de campo se realizó durante el mes de junio de 2024, al final de la primavera y previo al inicio del periodo de canícula en la región. Se evaluaron nueve parques urbanos ubicados en el municipio Monterrey, seleccionados de manera dirigida para representar la variabilidad en tamaño y distribución espacial de las áreas verdes de la ciudad (Figura 1). Se consideraron criterios como accesibilidad, uso público, presencia de arbolado establecido y ubicación en distintos sectores urbanos (Alanís-Rodríguez et al., 2023).
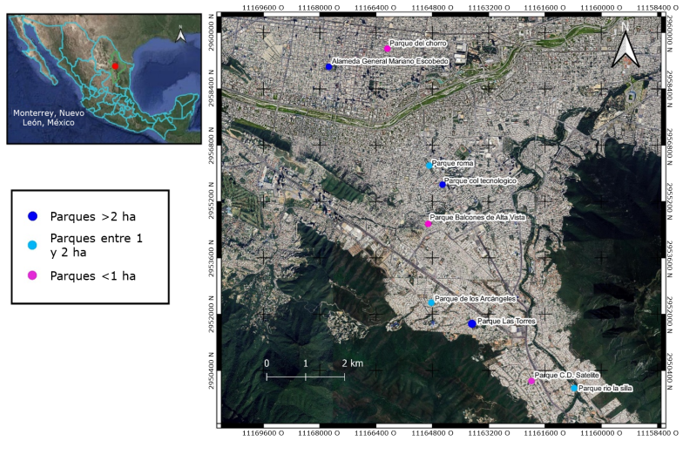
Figura 1. Ubicación de los parques urbanos evaluados en el municipio Monterrey, Nuevo León, México.
La clasificación por tamaño se hizo con base en la superficie de los parques urbanos delimitados mediante cartografía de Inegi (2020); se agruparon en tres categorías: pequeños (0.5-1.0 ha), medianos (1.0-2.0 ha) y grandes (>2.0 ha. Se incluyeron tres parques por categoría, para un total de nueve sitios (Figura 2). En cada parque se establecieron tres parcelas circulares, cuya superficie conjunta representó exactamente 10 % del área total. La intensidad de muestreo (10 % de la superficie) fue la misma para todos los parques, con el fin de estandarizar el esfuerzo de muestreo entre categorías de tamaño y permitir la comparación de la estructura y diversidad del arbolado bajo un criterio proporcional al área evaluada.
El radio de las parcelas fue variable y se ajustó según la extensión de cada parque para mantener una intensidad de muestreo constante equivalente a 10 % de su superficie. Esta modificación respondió únicamente a la diferencia en el tamaño de los parques y permitió conservar un esfuerzo de muestreo proporcional entre todas las categorías evaluadas. Las parcelas se distribuyeron aleatoriamente dentro de cada parque mediante la generación de puntos aleatorios en el software QGIS versión 3.18.3 (QGIS Development Team, 2021). Posteriormente, cada punto se utilizó como centro de una parcela circular, se procuró que esta permaneciera dentro de los límites del parque.
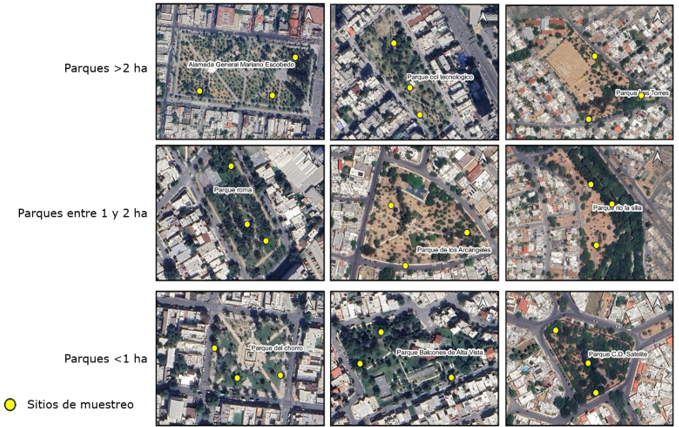
Figura 2. Parques urbanos evaluados en el municipio Monterrey, Nuevo León, México.
Variables dasométricas y registro del arbolado
Se registraron todos los individuos arbóreos presentes dentro de las parcelas de muestreo, con un diámetro a la altura del pecho (DAP) igual o mayor a 5 cm. En cada individuo se midió el DAP a 1.30 m sobre el nivel del suelo mediante forcípula forestal (Haglöf® modelo Mantax Blue) (Avery & Burkhart, 2002). La altura total se estimó con métodos indirectos, para ello se usó un clinómetro (Suunto® modelo Pm-5), y el diámetro de copa se midió en dos direcciones perpendiculares, norte-sur (N-S) y este-oeste (E-O), utilizando cinta métrica (Truper® modelo 12639 de 30 m); el diámetro medio de copa se calculó como el promedio de ambas mediciones y posteriormente, se estimó la cobertura de copa (Pretzsch, 2009).
La identificación taxonómica se efectuó a nivel de especie mediante literatura especializada y claves botánicas regionales (Rzedowski, 2006). Además, se registró el número de individuos por especie para el análisis de la composición, estructura y diversidad del arbolado urbano.
Estructura del arbolado
Para evaluar la contribución ecológica de cada taxón dentro del arbolado urbano, se calcularon la abundancia relativa (Ar), dominancia relativa (Dr), frecuencia relativa (Fr) y el Índice de Valor de Importancia (IVI), de acuerdo con la metodología propuesta por Alanís-Rodríguez et al. (2022). El IVI se obtuvo mediante la sumatoria de Ar, Dr y Fr, dividida entre tres, con el fin de estandarizar los valores en una escala de 0 a 100 y facilitar su interpretación. Este índice permitió identificar las especies con mayor relevancia ecológica dentro de cada parque.
Índices de diversidad
La diversidad del arbolado urbano se evaluó de manera independiente para cada parque mediante la riqueza de especies (S) y los índices de Margalef (DMg), Shannon-Wiener (H′) y complemento de Simpson (1-D), los cuales son utilizados para describir la diversidad biológica en comunidades vegetales (Magurran, 2004; Moreno, 2001). La riqueza de especies (S) correspondió al total de taxa registrados por parque. Posteriormente, los valores obtenidos se utilizaron para comparar la diversidad entre las categorías de tamaño de los parques.
Análisis estadístico
Las diferencias en la estructura, diversidad y dominancia del arbolado urbano entre parques pequeños, medianos y grandes se evaluaron con la prueba no paramétrica de Kruskal-Wallis, debido al tamaño reducido de muestra por grupo y a la ausencia de normalidad en los datos. Las variables estructurales analizadas fueron número de individuos, número de especies, número de familias y densidad (individuos ha-1); para la diversidad se consideraron los índices de Margalef, Shannon-Wiener y complemento de Simpson. Además, se evaluaron métricas de dominancia derivadas del Índice de Valor de Importancia (IVI), que incluyeron el IVI máximo por parque, el número de especies dominantes (IVIr>10 %) y la proporción acumulada del IVI correspondiente a las tres especies con mayor valor en cada parque. Los análisis se realizaron en el software PAST versión 4 (Hammer et al., 2001), con un nivel de significancia de α=0.05.
Resultados
Se registraron 243 individuos arbóreos, distribuidos en nueve parques urbanos del municipio Monterrey. El número de individuos por parque varió entre 13 y 49, mientras que la riqueza de especies de 2 a 15, misma que fue mayor en los más grandes, así como en el número de familias; de ellos, destacó la Alameda con 15 especies y 12 familias. En contraste, algunos parques pequeños y medianos mostraron menor riqueza; particularmente el Parque Roma, donde se identificaron solo dos especies e igual número de familias. La densidad de individuos varió entre sitios, con valores más altos en parques pequeños e inferiores en parques grandes (Cuadro 1).
Cuadro 1. Caracterización estructural del arbolado urbano en parques de Monterrey, Nuevo León, México.
Parque |
Tamaño |
Superficie (ha) |
I |
E |
F |
Den |
Balcones de Altavista |
Chico |
0.56 |
18 |
6 |
4 |
32.1 |
del Chorro |
0.65 |
13 |
5 |
4 |
20.0 |
|
CD Satélite |
0.63 |
21 |
3 |
2 |
33.3 |
|
Roma |
Mediano |
1.14 |
21 |
2 |
2 |
18.4 |
Arcángeles |
1.17 |
32 |
7 |
5 |
27.4 |
|
Río La Silla |
1.78 |
30 |
7 |
6 |
16.9 |
|
Col. Tecnológico |
Grande |
2.50 |
27 |
5 |
3 |
10.8 |
Col. Las Torres |
2.83 |
32 |
11 |
7 |
11.3 |
|
Alameda |
6.41 |
49 |
15 |
12 |
7.6 |
I = Individuos; E = Especies; F = Familias; Den = Densidad (ind ha-1).
El análisis del IVI evidenció una marcada dominancia de ciertas especies. En los parques pequeños, Fraxinus americana L. y Quercus virginiana Mill. presentaron los valores más altos de IVI, destacó F. americana en el Parque CD Satélite con un IVIr de 77.2 %. De manera similar, en el Parque del Chorro esta especie también tuvo una alta dominancia, acompañada por Quercus polymorpha Schltdl. & Cham. y Eucalyptus globulus Labill. (Cuadro 2).
Cuadro 2. Variables poblacionales de las especies registradas en parques pequeños de Monterrey, Nuevo León, México.
Parque |
Especie |
Ni |
Ar (%) |
Dr (%) |
Fr (%) |
IVIr (%) |
Balcones de Alta vista |
Fraxinus americana L. |
7 |
38.9 |
44.8 |
22.2 |
35.3 |
Quercus virginiana Mill. |
7 |
38.9 |
30 |
33.3 |
34.1 |
|
Neltuma laevigata (Humb. & Bonpl. ex Willd.) M. C. Johnst |
1 |
5.6 |
12.6 |
11.1 |
9.8 |
|
Pinus halepensis Mill. |
1 |
5.6 |
5.1 |
11.1 |
7.2 |
|
Ebenopsis ebano (Berland.) Barneby & J. W. Grimes |
1 |
5.6 |
4.8 |
11.1 |
7.2 |
|
Lagerstroemia indica L. |
1 |
5.6 |
2.7 |
11.1 |
6.4 |
|
CD Satélite |
Fraxinus americana L. |
18 |
85.7 |
85.8 |
60 |
77.2 |
Ebenopsis ebano (Berland.) Barneby & J. W. Grimes |
2 |
9.5 |
10 |
20 |
13.2 |
|
Erythrostemon mexicanus (A. Gray) Gagnon & G. P. Lewis |
1 |
4.8 |
4.2 |
20 |
9.7 |
|
del Chorro |
Fraxinus americana L. |
6 |
46.2 |
22.7 |
28.6 |
32.5 |
Quercus polymorpha Schltdl. & Cham. |
3 |
23.1 |
30 |
28.6 |
27.2 |
|
Eucalyptus globulus Labill. |
1 |
7.7 |
32 |
14.3 |
18 |
|
Koelreuteria elegans (Seem.) A. C. Sm. |
2 |
15.4 |
14.6 |
14.3 |
14.8 |
|
Quercus virginiana Mill. |
1 |
7.7 |
0.7 |
14.3 |
7.6 |
Ni =Número de individuos; Ar = Abundancia relativa; Dr = Dominancia relativa; Fr = Frecuencia relativa; IVIr = Índice de Valor de Importancia relativo.
En los parques medianos, se observó una tendencia similar con una fuerte Dr de Fraxinus americana en el Parque Roma (IVIr=81.4 %). En otros parques, tales como Río La Silla y Arcángeles, aunque la dominancia se distribuyó entre varias especies, F. americana, Taxodium mucronatum Ten. y Neltuma laevigata (Humb. & Bonpl. ex Willd.) M. C. Johnst mantuvieron valores elevados de IVI, lo que indica su importancia estructural dentro de esos sitios (Cuadro 3).
Cuadro 3. Variables poblacionales de las especies registradas en parques medianos de Monterrey, Nuevo León, México.
Parque |
Especie |
Ni |
Ar (%) |
Dr (%) |
Fr (%) |
IVIr (%) |
Arcángeles |
Eucalyptus globulus Labill. |
7 |
21.9 |
46.7 |
14.3 |
27.6 |
Quercus virginiana Mill. |
8 |
25 |
16.4 |
21.4 |
20.9 |
|
Neltuma laevigata (Humb. & Bonpl. ex Willd.) M. C. Johnst |
8 |
25 |
17 |
14.3 |
18.8 |
|
Fraxinus americana L. |
4 |
12.5 |
9.5 |
21.4 |
14.5 |
|
Celtis laevigata Willd. |
2 |
6.3 |
4.6 |
14.3 |
8.4 |
|
Parkinsonia aculeata L. |
2 |
6.3 |
5.2 |
7.1 |
6.2 |
|
Ebenopsis ebano (Berland.) Barneby & J. W. Grimes |
1 |
3.1 |
0.6 |
7.1 |
3.6 |
|
Río La Silla |
Fraxinus americana L. |
8 |
26.7 |
30.8 |
18.2 |
25.2 |
Taxodium mucronatum Ten. |
3 |
10 |
33.5 |
18.2 |
20.6 |
|
Ehretia anacua (Terán & Berland.) I. M. Johnst. |
6 |
20 |
8.8 |
18.2 |
15.7 |
|
Platanus occidentalis L. |
6 |
20 |
14.1 |
9.1 |
14.4 |
|
Celtis laevigata Willd. |
4 |
13.3 |
8.9 |
18.2 |
13.5 |
|
Salix humboldtiana Willd. |
2 |
6.7 |
3.1 |
9.1 |
6.3 |
|
Leucaena leucocephala (Lam.) de Wit |
1 |
3.3 |
0.7 |
9.1 |
4.4 |
|
Roma |
Fraxinus americana L. |
19 |
90.5 |
93.6 |
60 |
81.4 |
Quercus virginiana Mill. |
2 |
9.5 |
6.4 |
40 |
18.6 |
Ni =Número de individuos; Ar = Abundancia relativa; Dr = Dominancia relativa; Fr = Frecuencia relativa; IVIr = Índice de Valor de Importancia relativo.
En los parques grandes, la dominancia también se concentró en un número reducido de especies. F. americana continuó siendo una de las especies más importantes, especialmente en los parques Tecnológico y Las Torres. Asimismo, Quercus virginiana destacó en el Parque Alameda, junto con otros taxa como Washingtonia robusta H. Wendl. A pesar de una mayor riqueza de especies en estos parques, los valores de IVI revelaron que la estructura del arbolado está dominada por pocas especies con alta abundancia y cobertura (Cuadro 4).
Cuadro 4. Variables poblacionales de las especies registradas en parques grandes de Monterrey, Nuevo León, México.
Parque |
Especie |
Ni |
Ar (%) |
Dr (%) |
Fr (%) |
IVIr (%) |
Alameda |
Quercus virginiana Mill. |
18 |
36.7 |
39.2 |
19.5 |
31.7 |
Fraxinus americana L. |
14 |
28.6 |
27.6 |
14.3 |
23.5 |
|
Washingtonia robusta H. Wendl. |
4 |
8.2 |
16.7 |
9.5 |
11.5 |
|
Morus celtidifolia Kunth |
2 |
4.1 |
3.6 |
9.5 |
5.7 |
|
Celtis laevigata Willd. |
2 |
4.1 |
4.4 |
4.8 |
4.4 |
|
Populus tremuloides Michx. |
1 |
2 |
3.4 |
4.8 |
3.4 |
|
Platanus occidentalis L. |
1 |
2 |
1.6 |
4.8 |
2.8 |
|
Diospyros palmeri Eastw. |
1 |
2 |
0.9 |
4.8 |
2.6 |
|
Koelreuteria elegans (Seem.) A. C. Sm. |
1 |
2 |
0.9 |
4.8 |
2.6 |
|
Juniperus deppeana Steud. |
1 |
2 |
0.5 |
4.8 |
2.4 |
|
Taxodium mucronatum Ten. |
1 |
2 |
0.4 |
4.8 |
2.4 |
|
Washingtonia filifera (Gloner ex Kerch., Burv., Pynaert, Rodigas & Hull) de Bary |
1 |
2 |
0.4 |
4.8 |
2.4 |
|
Yucca filifera Chabaud |
1 |
2 |
0.2 |
4.8 |
2.3 |
|
Ehretia anacua (Terán & Berland.) I. M. Johnst. |
1 |
2 |
0.2 |
4.8 |
2.3 |
|
Las Torres |
Fraxinus americana L. |
14 |
43.8 |
37.1 |
21.4 |
34.1 |
Eucalyptus globulus Labill. |
5 |
15.6 |
30.2 |
7.1 |
17.7 |
|
Populus tremuloides Michx. |
3 |
9.4 |
12.3 |
14.3 |
12 |
|
Neltuma laevigata (Humb. & Bonpl. ex Willd.) M. C. Johnst |
1 |
3.1 |
9.3 |
7.1 |
6.5 |
|
Quercus virginiana Mill. |
2 |
6.3 |
3.7 |
7.1 |
5.7 |
|
Ehretia anacua (Terán & Berland.) I. M. Johnst |
2 |
6.3 |
2.5 |
7.1 |
5.3 |
|
Vachellia farnesiana (L.) Wight & Arn. |
1 |
3.1 |
1.9 |
7.1 |
4.1 |
|
Neltuma glandulosa (Torr.) Britton & Rose |
1 |
3.1 |
1.8 |
7.1 |
4 |
|
Syagrus romanzoffiana (Cham.) Glassman |
1 |
3.1 |
0.7 |
7.1 |
3.6 |
|
Citrus×limon (L.) Osbeck |
1 |
3.1 |
0.4 |
7.1 |
3.6 |
|
Ligustrum japonicum Thunb. |
1 |
3.1 |
0.1 |
7.1 |
3.5 |
|
Tecnológico |
Fraxinus americana L. |
23 |
85.2 |
83.3 |
33.3 |
67.3 |
Neltuma laevigata (Humb. & Bonpl. ex Willd.) M. C. Johnst |
1 |
3.7 |
8.1 |
16.7 |
9.5 |
|
Leucaena leucocephala (Lam.) de Wit |
1 |
3.7 |
5 |
16.7 |
8.5 |
|
Parkinsonia aculeata L. |
1 |
3.7 |
3.6 |
16.7 |
8 |
|
Ehretia anacua (Terán & Berland.) I. M. Johnst |
1 |
3.7 |
0 |
16.7 |
6.8 |
Ni = Número de individuos; Ar = Abundancia relativa; Dr = Dominancia relativa; Fr = frecuencia relativa; IVIr = Índice de Valor de Importancia relativo.
Los índices de diversidad evidenciaron variación entre parques, sin diferencias significativas entre las categorías de tamaño. El Índice de Margalef presentó valores de 0.33 a 3.60, los mayores registros correspondieron a la Alameda, mientras que el Índice de Shannon-Wiener fue de 0.31 a 1.94, lo cual indicó variación en la diversidad del arbolado entre parques. Los valores para el complemento de Simpson fueron de 0.17 a 0.82, que evidenciaron diferencias en la dominancia de especies entre parques. En general, no se detectaron diferencias significativas en los índices de diversidad entre las categorías de tamaño de los parques (Cuadro 5).
Cuadro 5. Diversidad del arbolado urbano en parques de Monterrey en función de su tamaño.
Tamaño |
Sitio |
Índice de Margalef |
Índice de Simpson |
Índice de Shannon-Weiner |
Chico |
Balcones |
1.73 |
0.69 |
1.38 |
del Chorro |
1.56 |
0.70 |
1.38 |
|
Satélite |
0.66 |
0.25 |
0.50 |
|
Mediano |
Roma |
0.33 |
0.17 |
0.31 |
Río la Silla |
1.76 |
0.82 |
1.79 |
|
Arcángeles |
1.73 |
0.80 |
1.74 |
|
Grande |
Alameda |
3.60 |
0.78 |
1.94 |
Tecnológico |
1.21 |
0.27 |
0.62 |
|
Las Torres |
2.89 |
0.80 |
1.87 |
La prueba de Kruskal-Wallis indicó que la densidad de individuos (ind ha-1) fue la única variable con diferencias significativas entre categorías de tamaño de los parques. De manera descriptiva, los valores más altos de densidad se observaron en parques pequeños, mientras que los más bajos correspondieron a parques grandes (cuadros 1 y 6). En contraste, no se detectaron diferencias significativas en el número de individuos, de especies, familias, ni en los índices de diversidad entre las categorías de tamaño. De igual forma, las métricas de dominancia derivadas del IVI no presentaron diferencias significativas en el IVI máximo por parque, el número de especies dominantes, ni en la proporción acumulada del IVI de los taxa principales, ello evidenció la falta de diferencias significativas en las métricas de dominancia entre las categorías de tamaño (Cuadro 6).
Cuadro 6. Comparación de variables estructurales, índices de diversidad y métricas de dominancia del arbolado urbano entre categorías de tamaño de parque en Monterrey, Nuevo León, México.
Variable |
Estadístico (H) |
Valor de p |
Número de individuos |
1.87 |
0.392 |
Número de especies |
2.67 |
0.263 |
Número de familias |
2.40 |
0.301 |
Densidad (ind ha-1) |
6.22 |
0.045* |
Índice de Margalef |
2.00 |
0.368 |
Índice de Simpson (1-D) |
0.89 |
0.641 |
Índice de Shannon-Wiener |
1.56 |
0.459 |
IVI máximo por parque |
0.80 |
0.670 |
Número de especies dominantes (IVIr>10 %) |
2.27 |
0.322 |
IVI acumulado de las tres especies principales |
1.69 |
0.430 |
*Indican diferencias significativas (p<0.05).
Discusión
En el presente estudio no se detectaron diferencias significativas en la estructura, diversidad y dominancia del arbolado urbano entre parques de diferente tamaño en Monterrey. Estos resultados sugieren que, en los parques evaluados, la organización de los árboles podría estar más relacionada con las prácticas de manejo y la selección de especies que con los procesos ecológicos tradicionalmente asociados al tamaño del área (Anderson et al., 2023; Aronson et al., 2016; Kowarik, 2011). Ese patrón también se ha documentado en estudios en los que la estructura del arbolado urbano responde, principalmente, a decisiones de manejo y selección de especies, sobre los factores ambientales o espaciales (Alanís-Rodríguez et al., 2023; Canizales-Velázquez et al., 2021).
En ecología, uno de los patrones más investigados es la relación especie-área, la cual establece que, a mayor superficie, más riqueza y diversidad de especies, debido al incremento en la heterogeneidad ambiental y la disponibilidad de nichos (Drakare et al., 2006). Sin embargo, en el presente estudio no se detectó una relación clara entre el tamaño del parque y la diversidad de las especies arbóreas, lo que coincide con lo referido por Chang et al. (2021).
Los resultados de la presente investigación sugieren que la influencia de las prácticas de manejo y la selección de especies podría ser mayor que la del tamaño del área, sobre la estructura de las comunidades arbóreas. En estos sistemas, la composición vegetal no depende exclusivamente de procesos ecológicos como la dispersión o la competencia, sino también de decisiones de diseño, selección de especies y prácticas de manejo (Kowarik, 2011). En consecuencia, parques de distinta superficie pueden presentar valores similares de diversidad al estar sujetos a criterios de arborización homogéneos. Ese desacoplamiento entre área y diversidad se ha citado en estudios urbanos, donde los factores antrópicos pueden superar la influencia de los gradientes espaciales en la estructuración de las comunidades vegetales (Aronson et al., 2016; Beninde et al., 2015).
Resultados similares se han descrito para México, en los cuales la diversidad del arbolado urbano no muestra una relación consistente con el tamaño de las áreas verdes debido al predominio de prácticas de manejo y selección de especies (Jara-Toto et al., 2023; Saavedra-Romero et al., 2019). Los hallazgos obtenidos proporcionan una base para futuros estudios que incorporen un mayor número de sitios y enfoques analíticos complementarios.
Los patrones de dominancia observados en este estudio evidenciaron que un número reducido de especies, particularmente Fraxinus americana y Quercus virginiana, concentró los valores más altos del Índice de Valor de Importancia (IVI). Este resultado refleja comunidades donde pocas especies aportan una elevada proporción de la abundancia, cobertura y frecuencia del arbolado urbano. La predominancia de un conjunto reducido de taxa se ha documentado en diversos estudios sobre ecosistemas urbanos y se ha asociado con la selección recurrente de especies y las prácticas de manejo del arbolado (Aronson et al., 2016; Kendal et al., 2012; Yang et al., 2023).
En México, estudios realizados en distintas ciudades han registrado tendencias similares de simplificación estructural del arbolado urbano (Jara-Toto et al., 2023; Saavedra-Romero et al., 2019). En el ámbito regional, investigaciones en el noreste del país también han citado la predominancia de pocos taxa asociadas a prácticas de manejo y selección (Alanís-Rodríguez et al., 2022; Leal Elizondo et al., 2018). Este proceso se relaciona con la disponibilidad de especies en viveros, la preferencia por taxones ornamentales y la implementación de esquemas de arborización estandarizados que conducen a configuraciones similares del arbolado urbano, a pesar de las diferencias ambientales entre sitios (Kendal et al., 2012).
La concentración del Índice de Valor de Importancia (IVI) en un número reducido de especies también tiene implicaciones para el funcionamiento ecológico del arbolado urbano (Atchadé et al., 2023). Comunidades dominadas por pocas especies presentan una menor equidad en la distribución de abundancias, condición que puede reducir la resiliencia frente a disturbios bióticos y abióticos, al depender de un conjunto limitado de especies (Sjöman et al., 2018, 2024).
Diversificar la composición del arbolado constituye una estrategia recomendada para incrementar la estabilidad ecológica de las áreas verdes urbanas y disminuir el riesgo asociado a plagas, enfermedades o eventos climáticos extremos (Sjöman et al., 2018). Los resultados de este estudio coinciden con lo señalado para diversas ciudades de México, donde la concentración del IVI en pocas especies representa una característica recurrente del arbolado urbano (Alanís-Rodríguez et al., 2022; Jara-Toto et al., 2023; Leal Elizondo et al., 2018; Saavedra-Romero et al., 2019).
Aunque, la diversidad de especies no mostró diferencias significativas entre categorías de tamaño, el análisis del IVI evidenció patrones de dominancia que no son detectables solo mediante los índices tradicionales de diversidad (Osako et al., 2022). La concentración de abundancia, dominancia y frecuencia en un número reducido de especies indica una distribución desigual de la importancia ecológica dentro del arbolado urbano, lo que complementa la información proporcionada por los índices de diversidad. Esto coincide con estudios en los cuales se destaca que la diversidad taxonómica y los indicadores estructurales aportan información complementaria para caracterizar la organización de las comunidades vegetales en ambientes urbanos (Magurran, 2004; Sjöman et al., 2018).
En este sentido, la evaluación conjunta de métricas de diversidad y estructura resulta fundamental para comprender la dinámica del arbolado urbano (Love et al., 2022), ya que permite identificar no solo cuántas especies están presentes, sino también cuál es la importancia ecológica relativa de cada una dentro de la comunidad (Magurran, 2004). Este enfoque integrado se ha recomendado para orientar el manejo del arbolado urbano (Aronson et al., 2016; Kendal et al., 2012). A partir de los resultados obtenidos, se recomienda que los programas de arborización promuevan una mayor diversidad de especies, reduzcan la dependencia de un número limitado de taxa dominantes y prioricen el uso de especies nativas adaptadas a las condiciones ambientales locales, con el fin de favorecer comunidades arbóreas más diversas y estructuralmente equilibradas.
Conclusiones
Los resultados del presente estudio muestran que, en los parques evaluados, no se detectaron diferencias significativas en la estructura, diversidad y dominancia del arbolado urbano entre las categorías de tamaño consideradas. En conjunto, los hallazgos sugieren que las prácticas de manejo y la selección de especies podrían ejercer una mayor influencia que la superficie del parque sobre la configuración de los árboles en las áreas verdes evaluadas.
Los patrones de dominancia observados evidencian la concentración de la importancia ecológica en un número reducido de especies, lo que resalta la conveniencia de incorporar, además de los índices tradicionales de diversidad, métricas estructurales que permitan caracterizar de manera más integral a dichos ejemplares. Con base en los datos obtenidos, se recomienda que los programas de arborización promuevan una mayor diversidad de especies, reduzcan la dependencia de un número limitado de taxa dominantes y prioricen el uso de especies nativas adaptadas a las condiciones ambientales locales, con el fin de favorecer comunidades arbóreas más diversas y estructuralmente equilibradas.
Agradecimientos
Los autores agradecen a la Secretaría de Ciencia, Humanidades, Tecnología e Innovación (Secihti), por proporcionar la beca de maestría de Melvin Isac De La Rosa Estrada.
Conflicto de intereses
Los autores declaran no tener conflicto de intereses. Homero Gárate Escamilla declara no haber participado en procedo editorial del manuscrito.
Contribución por autor
Homero Gárate-Escamilla: redacción de manuscrito e interpretación de resultados; Melvin Isac De La Rosa-Estrada: análisis de datos; Aldo Tovar-Cárdenas: interpretación de resultados y redacción del manuscrito; José Israel Yerena-Yamallel y Pablo Marroquín-Morales: revisión y redacción del manuscrito.
Referencias
Alanís-Rodríguez, E., Mora-Olivo, A., Jiménez-Pérez, J., & Cuéllar-Rodríguez, G. (2023). Uso de árboles nativos en áreas verdes urbanas: tendencias en el noreste de México. Revista Mexicana de Ciencias Forestales, 14(76), 4-21. https://doi.org/10.29298/rmcf.v14i76.1314
Alanís-Rodríguez, E., Mora-Olivo, A., Molina-Guerra, V. M., Gárate-Escamilla, H., & Sigala-Rodríguez, J. Á. (2022). Caracterización del arbolado urbano del centro de Hualahuises, Nuevo León. Revista Mexicana de Ciencias Forestales, 13(73), 29-49. https://doi.org/10.29298/rmcf.v13i73.1271
Anderson, E. C., Locke, D. H., Pickett, S. T. A., & LaDeau, S. L. (2023). Just street trees? Street trees increase local biodiversity and biomass in higher income, denser neighborhoods. Ecosphere, 14(2), Article e4389. https://doi.org/10.1002/ecs2.4389
Aronson, M. F. J., Nilon, C. H., Lepczyk, C. A., Parker, T. S., Warren, P. S., Cilliers, S. S., Goddard, M. A., Hahs, A. K., Herzog, C., Katti, M., La Sorte, F. A., Williams, N. S. G., & Zipperer, W. C. (2016). Hierarchical filters determine community assembly of urban species pools. Ecology, 97(11), 2952-2963. https://doi.org/10.1002/ecy.1535
Atchadé, A. J., Kanda, M., Folega, F., Yédomonhan, H., Dourma, M., Wala, K., & Akpagana, K. (2023). Trees diversity and species with high ecological importance for a resilient urban area: Evidence from Cotonou City (West Africa). Climate, 11(9), Article 182. https://doi.org/10.3390/cli11090182
Avery, T. E., & Burkhart, H. E. (2002). Forest measurements (5th ed.). McGraw-Hill. https://www.scirp.org/reference/referencespapers?referenceid=3377804
Beninde, J., Veith, M., & Hochkirch, A. (2015). Biodiversity in cities needs space: a meta-analysis of factors determining intra-urban biodiversity variation. Ecology Letters, 18, 581-592. https://doi.org/10.1111/ele.12427
Canizales-Velázquez, P. A., Alanís-Rodríguez, E., García-García, S. A., Holguín-Estrada, V. A., & Collantes-Chávez-Costa, A. (2021). Estructura y diversidad arbórea de un bosque de galería urbano en el río Camachito, Noreste de México. Polibotánica, 51, 91-105. https://doi.org/10.18387/polibotanica.51.6
Chang, C.-R., Chen, M.-C., & Su, M.-H. (2021). Natural versus human drivers of plant diversity in urban parks and the anthropogenic species-area hypotheses. Landscape and Urban Planning, 208, Article 104023. https://doi.org/10.1016/j.landurbplan.2020.104023
Drakare, S., Lennon, J. J., & Hillebrand, H. (2006). The imprint of the geographical, evolutionary and ecological context on species–area relationships. Ecology Letters, 9(2), 95-241. https://doi.org/10.1111/j.1461-0248.2005.00848.x
Grimm, N. B., Faeth, S. H., Golubiewski, N. E., Redman, C. L., Wu, J., Bai, X., & Briggs, J. M. (2008). Global change and the ecology of cities. Science, 319(5864), 756-760. https://doi.org/10.1126/science.1150195
Hammer, Ø., Harper, D. A. T., & Ryan, P. D. (2001). PAST: Paleontological statistics software package for education and data analysis. Palaeontologia Electronica, 4(1), Article 4. https://palaeo-electronica.org/2001_1/past/past.pdf
Instituto Nacional de Estadística y Geografía. (2020). Censo de población y vivienda (CPV) 2020. Instituto Nacional de Estadística y Geografía. https://www.inegi.org.mx/programas/ccpv/2020/
Jara-Toto, E., Armenta-Montero, S., Aquino-Zapata, A. M., & Carvajal-Hernández, C. I. (2023). Diversidad y estructura de la vegetación leñosa en cuatro bosques urbanos de la zona conurbada Xalapa-Banderilla, Veracruz, México. Acta Botánica Mexicana, (130), Artículo e2214. https://doi.org/10.21829/abm130.2023.2214
Kendal, D., Williams, N. S. G., & Williams, K. J. H. (2012). A cultivated environment: Exploring the global distribution of plants in gardens, parks and streetscapes. Urban Ecosystems, 15, 637-652. https://doi.org/10.1007/s11252-011-0215-2
Kowarik, I. (2011). Novel urban ecosystems, biodiversity, and conservation. Environmental Pollution, 159(8-9), 1974-1983. https://doi.org/10.1016/j.envpol.2011.02.022
Leal-Elizondo, C. E., Leal-Elizondo, N., Alanís-Rodríguez, E., Pequeño-Ledezma, M. Á., Mora-Olivo, A., & Buendía-Rodríguez, E. (2018). Estructura, composición y diversidad del arbolado urbano de Linares, Nuevo León. Revista Mexicana de Ciencias Forestales, 9(48), 252-270. https://doi.org/10.29298/rmcf.v8i48.129
Love, N. L. R., Nguyen, V., Pawlak, C., Pineda, A., Reimer, J. L., Yost, J. M., Fricker, G. A., Ventura, J. D., Doremus, J. M., Crow, T., & Ritter, M. K. (2022). Diversity and structure in California’s urban forest: What over six million data points tell us about one of the world's largest urban forests. Urban Forestry & Urban Greening, 74, Article 127679. https://doi.org/10.1016/j.ufug.2022.127679
Magurran, A. E. (2004). Measuring biological diversity. Blackwell Publishing. https://www.scirp.org/reference/referencespapers?referenceid=1371188
McKinney, M. L. (2006). Urbanization as a major cause of biotic homogenization. Biological Conservation, 127(3), 247-260. https://doi.org/10.1016/j.biocon.2005.09.005
Moreno, C. E. (2001). Métodos para medir la biodiversidad. Programa Iberoamericano de Ciencia y Tecnología para el Desarrollo, Oficina Regional de Ciencia y Tecnología para América Latina y el Caribe, Sociedad Entomológica Aragonesa. https://www.researchgate.net/publication/304346666_Metodos_para_medir_la_biodiversidad
Nowak, D. J., Greenfield, E. J., Hoehn, R. E., & Lapoint, E. (2013). Carbon storage and sequestration by trees in urban and community areas of the United States. Environmental Pollution, 178, 229-236. https://doi.org/10.1016/j.envpol.2013.03.019
Osako, L. K., Brito, L., & Silva, P. A. (2022). Urban forest trees: an ecological perspective for a management that promotes and mantains biodiversity in the city. Research, Society and Developmen, 11(1), Article e31811124887. https://doi.org/10.33448/rsd-v11i1.24887
Pretzsch, H. (2009). Forest dynamics, growth and yield. Springer. https://doi.org/10.1007/978-3-540-88307-4
QGIS Development Team. (2021). QGIS Geographic Information System (Version 3.18.3) [Software]. QGIS Development Team. https://www.qgis.org
Rzedowski, J. (2006). Vegetación de México (1ra ed. digital). Comisión Nacional para el Conocimiento y Uso de la Biodiversidad. https://drive.google.com/file/d/0B4QXYW6LByLUeDNSaE5jUFBWbmM/view?resourcekey=0-47doiOVtp0RQ13PyUp1PLw
Saavedra-Romero, L. de L., Hernández-de la Rosa, P., Alvarado-Rosales, D., Martínez-Trinidad, T., & Villa-Castillo, J. (2019). Diversidad, estructura arbórea e índice de valor de importancia en un bosque urbano de la Ciudad de México. Polibotánica, (47), 25-37. https://doi.org/10.18387/polibotanica.47.3
Sjöman, H., Hirons, A. D., & Bassuk, N. L. (2018). Improving confidence in tree species selection for challenging urban sites: a role for leaf turgor loss. Urban Ecosystems, 21, 1171-1188. https://doi.org/10.1007/s11252-018-0791-5
Sjöman, H., Watkins, H., Kelly, L. J., Hirons, A., Kainulainen, K., Martin, K. W. E., & Antonelli, A. (2024). Resilient trees for urban environments: The importance of intraspecific variation. Plants, People, Planet, 6(6), 1180-1189. https://doi.org/10.1002/ppp3.10518
Tzoulas, K., Korpela, K., Venn, S., Yli-Pelkonen, V., Kaźmierczak, A., Niemela, J., & James, P. (2007). Promoting ecosystem and human health in urban areas using green infrastructure: A literature review. Landscape and Urban Planning, 81(3), 167-178. https://doi.org/10.1016/j.landurbplan.2007.02.001
Williams, N. S. G., Schwartz, M. W., Vesk, P. A., McCarthy, M. A., Hahs, A. K., Clemants, S. E., Corlett, R. T., Duncan, R. P., Norton, B. A., Thompson, K., & McDonell, M. J. (2009). A conceptual framework for predicting the effects of urban environments on floras. Journal of Ecology, 97(1), 4-9. https://doi.org/10.1111/j.1365-2745.2008.01460.x
Yang, G., Ouyang, Y., Hou, X., Zhou, T., Ge, Y., Lu, Y., Wang, Y., & Chang, J. (2023). Homogenization of urban forests across the subtropical zones of China. Land, 12(8), Article 1559. https://doi.org/10.3390/land12081559
Todos los textos publicados por la Revista Mexicana de Ciencias Forestales –sin excepción– se distribuyen amparados bajo la licencia Creative Commons 4.0 Atribución-No Comercial (CC BY-NC 4.0 Internacional), que permite a terceros utilizar lo publicado siempre que mencionen la autoría del trabajo y a la primera publicación en esta revista.