Revista Mexicana de Ciencias Forestales Vol. 17 (98)
Dasonomía Urbana (2026)
DOI: https://doi.org/10.29298/rmcf.v17i98.1674 Artículo de investigación
Sitios de referencia para la restauración de bosques periurbanos afectados por la minería en el distrito de Inambari, Amazonía peruana Reference sites for the restoration of mining-affected peri-urban forests in the Inambari district, Peruvian Amazon
Carlos Emerico Nieto Ramos1, Luis Armando Nieto Ramos2, Bayron Alexander Ruiz-Blandon3, Efrén Hernández-Alvarez4, Rosario Marilu Bernaola-Paucar5* |
Fecha de recepción/Reception date: 8 de abril de 2026.
Fecha de aceptación/Acceptance date: 16 de agosto de 2026.
_______________________________
1Facultad de Ingeniería, Escuela Profesional de Ingeniería Forestal y Medio Ambiente, Universidad Nacional Amazónica de Madre de Dios. Perú.
2Universidad Andina del Cusco, Filial Puerto Maldonado. Perú.
3Instituto Nacional de Investigaciones Forestales, Agrícolas y Pecuarias. México.
4Universidad de Guadalajara, Centro Universitario de Ciencias Biológicas y Agropecuarias, Departamento de Producción Forestal. México.
5Escuela Profesional de Ingeniería Agroindustrial, Facultad de Ingeniería, Universidad Nacional Autónoma Altoandina de Tarma. Perú.
*Autor para correspondencia; correo-e: rbernaola@unaat.edu.pe
*Corresponding author; e-mail: rbernaola@unaat.edu.pe
Resumen
Los bosques periurbanos afectados por actividades mineras pueden aportar referencias ecológicas para orientar la recuperación de áreas degradadas cuando conservan atributos representativos de composición, diversidad y estructura. En este estudio se evaluó el potencial de seis concesiones mineras de la cuenca del Río Inambari, Amazonía peruana, para funcionar como sitios de referencia en futuras acciones de restauración. Se establecieron parcelas rectangulares de 0.1 ha y se registraron todos los individuos arbóreos con diámetro a la altura del pecho ≥10 cm. Se determinaron la riqueza taxonómica, números de Hill de órdenes q=0, q=1 y q=2, el diámetro, la altura, área basal, Índice de Valor de Importancia y la similitud florística mediante los índices de Jaccard y Bray-Curtis, además de una ordenación de escalamiento multidimensional no métrico (NMDS). Se registraron 2 063 individuos, agrupados en 57 familias, 172 géneros y 404 especies. Edmilot I presentó la mayor riqueza observada y área basal; respecto al número efectivo de especies comunes en Washington III se registró el valor más alto, mientras que en Yesica ocurrió lo mismo, pero para el número efectivo de especies dominantes. Yhon Hittler y Juan Raul 2 mostraron menor diversidad efectiva y una marcada dominancia de Iriartea deltoidea. Washington III y Sarayacu tuvieron una NMDS muy semejante, y entre Yhon Hittler y Juan Raul 2. El uso complementario de varios sitios permite establecer referencias más representativas de la variabilidad ecológica del paisaje para orientar la restauración de bosques periurbanos afectados por la minería.
Palabras clave: Diversidad efectiva, estructura forestal, Índice de Valor de Importancia, minería aurífera, números de Hill, similitud florística.
Abstract
Peri-urban forests affected by mining activities can provide ecological benchmarks to guide the restoration of degraded areas when they retain representative attributes of composition, diversity, and structure. This study evaluated the potential of six mining concessions in the Inambari River basin, in the Peruvian Amazon, to serve as reference sites for future restoration efforts. Rectangular plots of 0.1 ha were established, and all tree individuals with a diameter at breast height ≥10 cm were recorded. Taxonomic richness, Hill’s q-numbers for orders q=0, q=1, and q=2, diameter, height, basal area, Importance Value Index, and floristic similarity were determined using the Jaccard and Bray-Curtis indexes, along with a non-metric multidimensional scaling (NMDS) analysis. A total of 2 063 individuals were recorded, grouped into 57 families, 172 genera, and 404 species. Edmilot I had the greatest observed richness and basal area; Washington III had the highest effective number of common species, while Yesica had the highest effective number of dominant species. Yhon Hittler and Juan Raul 2 showed lower effective diversity and a marked dominance of Iriartea deltoidea. Washington III and Sarayacu had very similar NMDS results, and so did Yhon Hittler and Juan Raul 2. The complementary use of multiple sites allows for the establishment of more representative benchmarks of the landscape’s ecological variability to guide the restoration of peri-urban forests affected by mining.
Keywords: Effective diversity, forest structure, Importance Value Index, gold mining, Hill’s numbers, floristic similarity.
Introducción
La restauración de los ecosistemas comprende un continuo de acciones orientadas a detener y revertir la degradación, desde la reducción de impactos, la remediación y la rehabilitación hasta la restauración ecológica. Esta última busca asistir la recuperación de un ecosistema nativo a partir de su composición, estructura, funcionamiento y capacidad de sostenerse en el tiempo. En ese marco, los sitios de referencia, los modelos de referencia y los ecosistemas de referencia cumplen funciones diferentes.
Un sitio de referencia es un área real que proporciona datos sobre la composición, estructura y funcionamiento del ecosistema. El modelo de referencia integra información procedente de uno o varios sitios, registros históricos y otras fuentes para representar la condición y la variabilidad esperadas durante la recuperación. El ecosistema de referencia corresponde a la condición ecológica que orienta la meta de restauración a largo plazo. Debido a que los ecosistemas presentan variación espacial y temporal, las referencias no deben entenderse como representaciones rígidas del pasado, sino como bases para definir trayectorias de recuperación compatibles con la historia ecológica y las condiciones actuales del paisaje (Higgs et al., 2014).
En la Amazonía peruana, la minería aurífera aluvial ocasiona pérdida de cobertura forestal, remoción y redistribución del suelo, alteración del drenaje y reducción de las fuentes de regeneración; modificaciones que generan mosaicos formados por remanentes de bosque, áreas severamente degradadas y comunidades secundarias con diferentes grados de desarrollo (Caballero-Espejo et al., 2018). Investigaciones realizadas en Madre de Dios muestran que la recuperación de la biomasa, la diversidad y la estructura depende del tipo de minería, la intensidad de la alteración y el tiempo transcurrido desde el abandono. También se ha comprobado que las especies nativas presentan respuestas contrastantes de supervivencia y crecimiento cuando son utilizadas en áreas degradadas por la extracción de oro (Garate-Quispe et al., 2024; Román-Dañobeytia et al., 2021).
La identificación de sitios de referencia en estos paisajes requiere información sobre la riqueza y diversidad de especies, la estructura arbórea, la dominancia y la semejanza florística entre áreas. La composición florística y la estructura no constituyen, por tanto, el propósito final del análisis, sino la base para seleccionar referencias locales, definir atributos iniciales y orientar futuras acciones de restauración. Los estudios florísticos realizados en bosques amazónicos peruanos y en áreas previamente reforestadas confirman el valor de esos indicadores para interpretar la reorganización de la vegetación y establecer criterios de recuperación (Alvarez-Montalván et al., 2021).
En este contexto, el objetivo del presente estudio fue identificar entre seis bosques periurbanos afectados por minería en el distrito de Inambari, aquellos con mayor potencial para funcionar como sitios de referencia para futuras acciones de restauración, mediante la caracterización de su composición florística, diversidad, estructura arbórea e importancia ecológica de las especies.
Materiales y Métodos
Área de estudio
El estudio se realizó en seis concesiones mineras ubicadas en la cuenca del Río Inambari, distrito de Inambari, provincia de Tambopata, departamento de Madre de Dios, al sureste de la Amazonía peruana. El área evaluada se localiza en el sistema de coordenadas UTM, datum WGS 84, zona 19S, entre 387743-465417 m E y 8504406-8535240 m N (Figura 1). Las concesiones se distribuyen a lo largo del corredor fluvial del Río Inambari, próximas a los centros de población: Limamoj, Asnai, Inambari Centro, El Progreso, Ancamayo Bajo y Puerto Maltas. El paisaje está influido por la minería aurífera aluvial, actividad que ha ocasionado pérdida de cobertura vegetal, remoción de suelo, modificación de cauces y alteraciones hidrológicas que han generado un mosaico de remanentes forestales, superficies degradadas y sectores con vegetación secundaria (Velásquez-Ramírez et al., 2020).
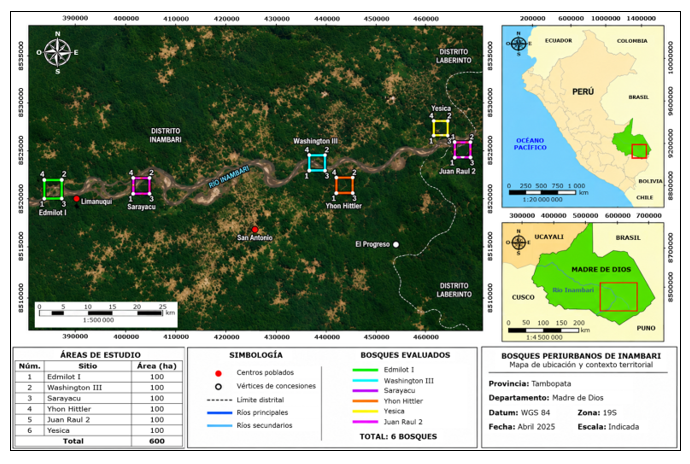
Figura 1. Ubicación de las seis concesiones mineras evaluadas en la cuenca del Río Inambari, Madre de Dios, Perú.
Diseño de muestreo y base de datos
Se establecieron parcelas rectangulares de 100×10 m, equivalentes a 0.1 ha, distribuidas dentro de las seis concesiones mineras. En cada parcela se registraron todos los individuos arbóreos con diámetro a la altura del pecho igual o mayor a 10 cm (DAP≥10 cm). Para cada individuo se anotaron la familia, el género, la especie, el DAP (cinta diamétrica Forestry Suppliers® modelo 283D) y la altura total (clinómetro Suunto®modelo PM-5/360 PC). La identificación taxonómica se realizó en campo con el apoyo de especialistas. Posteriormente, los nombres científicos se revisaron en la World Checklist of Vascular Plants para verificar los nombres aceptados, actualizar sinonimias, corregir inconsistencias ortográficas y unificar la clasificación taxonómica de los registros (Govaerts et al., 2021).
Composición florística y riqueza taxonómica
La composición florística se describió a partir del número de familias, géneros y especies registradas en cada concesión y en el total del área de estudio.
Análisis estructural del bosque
La estructura de la vegetación arbórea se evaluó mediante variables dasométricas, principalmente el diámetro a la altura del pecho (DAP) y la altura total (H). A partir del DAP se calculó el área basal individual (AB) de cada árbol mediante la siguiente expresión (Ecuación 1) (Pretzsch et al., 2015):
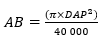 (1)
Donde:
AB = Área basal individual (m2)
DAP = Diámetro a la altura del pecho (cm)
ϖ = 3.1416
El área basal total por concesión se obtuvo a partir de la suma de las áreas basales individuales y se estandarizó a m2 ha-1 de acuerdo con la superficie efectivamente muestreada. En estudios de restauración, la comparación de la estructura, la diversidad y la composición entre áreas permite establecer valores de referencia y reconocer la variación ecológica que debe considerarse al definir metas de recuperación (Beauchamp & Shafroth, 2011; Ruiz-Jaén & Aide, 2005).
Índice de Valor de Importancia (IVI)
La importancia ecológica de las especies se evaluó mediante el Índice de Valor de Importancia (IVI), calculado como la suma de la abundancia relativa, la frecuencia relativa y la dominancia relativa (Ecuación 2) (Curtis & McIntosh, 1951):
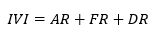 (2)
Donde:
IVI = Índice de Valor de Importancia
AR = Abundancia relativa
FR = Frecuencia relativa
DR = Dominancia relativa
Frecuencia relativa (Ecuación 3):
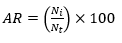 (3)
Donde:
Ni= Número de individuos de la especie i
Nt= Número total de individuos registrados
Frecuencia relativa (Ecuación 4):
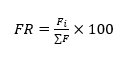 (4)
Donde:
Fi= Frecuencia de la especie i
∑F = Suma de las frecuencias de todas las especies
La frecuencia de cada especie se obtuvo a partir del número de parcelas en las que estuvo presente.
Frecuencia relativa (Ecuación 5):
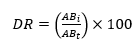 (5)
Donde:
ABi= Área basal total de la especie i
ABt= Área basal total de todas las especies
Análisis de diversidad alfa y beta
La diversidad alfa se evaluó con números de Hill de órdenes q=0, q=1 y q=2 (Ecuación 6 a 8). El orden q=0 corresponde a la riqueza observada de especies; q=1 representa el número efectivo de especies comunes y se obtuvo mediante la exponencial del Índice de Shannon; y q=2 expresa el número efectivo de especies dominantes y se calculó como el inverso de la concentración de Simpson. Este enfoque permite expresar la diversidad en unidades comparables de especies efectivas y evita las limitaciones interpretativas de los índices tradicionales (Jost & González-Oreja, 2012).
 (6)
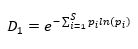 (7)
 (8)
Donde:
D0= Número efectivo de especies de orden 0 o riqueza observada
D1 = Número efectivo de especies comunes
D2 = Número efectivo de especies dominantes
S = Número total de especies registradas
pi = Proporción de individuos pertenecientes a la especie i
ln = Logaritmo natural
Los números de Hill se calcularon directamente a partir de las abundancias registradas en cada concesión. Debido a las diferencias en el esfuerzo de muestreo, la riqueza observada (q=0) se interpretó con cautela y de manera complementaria con q=1 y q=2, que incorporan la distribución de las abundancias. La diversidad beta se evaluó mediante los índices de similitud de Jaccard y Bray-Curtis (Bray & Curtis, 1957; Jaccard, 1912).
Criterios para la identificación de sitios de referencia
El potencial de cada concesión como sitio de referencia se valoró mediante la integración de cuatro grupos de atributos: riqueza y diversidad efectiva, estructura arbórea, importancia ecológica de las especies y similitud florística. Se consideraron relevantes los sitios que presentaron valores altos de diversidad o atributos estructurales destacados, así como aquellos con composiciones particulares que ampliaron la variabilidad representada. La selección no se basó en una puntuación única, sino en la complementariedad ecológica entre concesiones para construir una referencia más representativa del paisaje.
Análisis estadístico y multivariado
El análisis estadístico se realizó con SAS versión 9.4 (SAS Institute Inc., 2016). Se calcularon los estadísticos descriptivos y se verificó la normalidad de las variables con la prueba de Shapiro-Wilk. Debido al incumplimiento de este supuesto, para las diferencias entre concesiones en el DAP y la altura total se utilizó la prueba de Kruskal-Wallis. Cuando se detectaron diferencias significativas, se aplicó la prueba de comparaciones múltiples de Dwass-Steel-Critchlow-Fligner (Zhen et al., 2022). Los resultados se expresaron como media±error estándar y los grupos estadísticos se representaron mediante letras diferentes. En todos los análisis se consideró un nivel de significancia de α=0.05.
En PAST (Hammer et al., 2001) se calcularon las matrices de similitud de Jaccard y Bray-Curtis a partir de la composición y abundancia de especies por concesión. Para la ordenación de escalamiento multidimensional no métrico (NMDS), la similitud de Bray-Curtis se transformó en disimilitud. La NMDS se realizó en Python versión 3.13.5 (Python Software Foundation, 2026) a partir de la matriz de disimilitud de Bray-Curtis y la calidad de la ordenación se evaluó con el valor de estrés. La NMDS se empleó por su adecuación para representar diferencias de composición basadas en datos de abundancia y disimilitud ecológica (Clarke, 1993).
Resultados y Discusión
Composición florística y riqueza taxonómica
En las seis concesiones evaluadas se registraron 2 063 individuos arbóreos, distribuidos en 57 familias, 172 géneros y 404 especies (Cuadro 1).
Cuadro 1. Riqueza taxonómica del componente arbóreo en seis concesiones mineras de la cuenca del Río Inambari, Madre de Dios, Perú.
Área de estudio |
Parcelas |
Individuos |
Familias |
Géneros |
Especies |
Edmilot I |
10 |
553 |
44 |
114 |
158 |
Washington III |
10 |
562 |
38 |
103 |
154 |
Sarayacu |
10 |
582 |
39 |
105 |
156 |
Yhon Hittler |
3 |
112 |
23 |
39 |
41 |
Juan Raul 2 |
3 |
120 |
23 |
41 |
42 |
Yesica |
3 |
134 |
32 |
56 |
83 |
Total |
39 |
2 063 |
57 |
172 |
404 |
Desde la perspectiva de la restauración, el principal aporte no reside solo en la existencia de una riqueza alta, sino en la documentación de la identidad, abundancia y distribución de las especies registradas. Esta información, integrada con los atributos de diversidad y estructura forestal, permite reconocer conjuntos florísticos representativos y establecer referencias locales para seleccionar especies, definir metas de recuperación y evaluar, posteriormente, el desarrollo de las áreas restauradas. La integridad ecológica de los bosques secundarios debe valorarse mediante varios atributos complementarios, ya que ningún indicador aislado representa por sí solo la composición, la estructura y el funcionamiento del ecosistema (Rosenfield et al., 2023).
Índices de diversidad y atributos estructurales
Los números de Hill evidenciaron diferencias marcadas en la diversidad arbórea de las concesiones (Cuadro 2). La riqueza observada (q=0) fue mayor en Edmilot I, Sarayacu y Washington III, con 158, 156 y 154 especies, respectivamente; Yesica registró 83, mientras que Juan Raul 2 y Yhon Hittler presentaron 42 y 41 especies. Debido a la diferente intensidad de muestreo, estos valores deben interpretarse con cautela. Los órdenes q=1 y q=2 aportaron información complementaria al incorporar la distribución de las abundancias y reducir el peso relativo de las especies raras (Jost & González-Oreja, 2012).
Cuadro 2. Números de Hill de la diversidad arbórea en seis concesiones mineras de la cuenca del Río Inambari, Madre de Dios, Perú.
Área de estudio |
q=0 |
q=1 |
q=2 |
Edmilot I |
158 |
69.38 |
30.06 |
Washington III |
154 |
81.26 |
43.05 |
Sarayacu |
156 |
79.03 |
40.32 |
Yhon Hittler |
41 |
14.27 |
5.33 |
Juan Raul 2 |
42 |
16.01 |
6.39 |
Yesica |
83 |
67.82 |
53.44 |
q=0 representa la riqueza observada; q=1, el número efectivo de especies comunes; y q=2, el número efectivo de especies dominantes.
Desde el enfoque de restauración, Washington III y Sarayacu ofrecen referencias relevantes por combinar una riqueza alta con una amplia representación de especies comunes. Yesica aporta una condición complementaria, ya que presentó el mayor número efectivo de especies dominantes (q=2), lo que refleja una distribución más equilibrada de las abundancias. Edmilot I destacó por su mayor amplitud taxonómica. Estas diferencias muestran que ninguna concesión reúne por sí sola toda la variación florística del paisaje; por ello, el uso conjunto de varios sitios permite construir una referencia más representativa de las posibles trayectorias de recuperación. En paisajes tropicales intervenidos, comparar comunidades con distintas composiciones y niveles de diversidad permite definir metas de restauración acordes con la variabilidad local (Chazdon et al., 2009; Rother et al., 2019).
Los atributos estructurales variaron entre las concesiones. El área basal estandarizada por hectárea fue mayor en Edmilot I (34.64 m2 ha-1), seguida de Sarayacu (29.59 m2 ha-1), Washington III (29.19 m2 ha-1) y Yhon Hittler (27.03 m2 ha-1). Juan Raul 2 y Yesica registraron 22.00 y 16.37 m2 ha-1, respectivamente (Figura 2).

A = Diámetro a la altura del pecho; B = Altura total; C = Área basal total estandarizada por hectárea. En A y B, los puntos representan la media±error estándar. Letras distintas indican diferencias significativas (p<0.05).
Figura 2. Diámetro a la altura del pecho, altura total y área basal total estandarizada por hectárea en seis concesiones mineras de la cuenca del Río Inambari, Madre de Dios, Perú.
El patrón observado indica que el tamaño medio de los árboles y el área basal por hectárea no siguieron, necesariamente, la misma tendencia. Yhon Hittler presentó mayores valores de DAP y altura, pero un área basal inferior a la registrada en Edmilot I, Washington III y Sarayacu. En restauración, estos atributos se interpretan de manera complementaria para evaluar la proximidad estructural de la vegetación en recuperación respecto a los bosques de referencia (Ssekuubwa et al., 2022). Diferencias en DAP, altura y área basal también han sido documentadas entre bosques secundarios sometidos a distintas trayectorias de recuperación dentro del mismo distrito (Nytch et al., 2023).
Índice de Valor de Importancia y especies dominantes
El análisis del Índice de Valor de Importancia (IVI) mostró que en cada concesión, un conjunto reducido de especies concentró los mayores valores de importancia relativa; aunque su identidad y jerarquía variaron entre sitios (Cuadro 3). Este patrón coincide con la organización oligárquica descrita en bosques de la Alta Amazonía, donde un número reducido de especies comunes puede representar una parte considerable de los individuos y de la estructura forestal (Pitman et al., 2013).
Cuadro 3. Especies con mayor Índice de Valor de Importancia (IVI) por área de estudio en la cuenca del Río Inambari, Madre de Dios, Perú.
Área de estudio |
Especie |
IVI (%) |
Edmilot I |
Iriartea deltoidea Ruiz & Pav. |
7.25 |
Otoba parvifolia (Markgr.) A. H. Gentry |
5.12 |
|
Hevea guianensis Aubl. |
3.30 |
|
Washington III |
Euterpe precatoria Mart. |
5.41 |
Iriartea deltoidea Ruiz & Pav. |
4.68 |
|
Tetragastris altissima (Aubl.) Swart (sinonimia de Protium altissimum (Aubl.) Marchand) |
3.76 |
|
Sarayacu |
Euterpe precatoria Mart. |
5.66 |
Iriartea deltoidea Ruiz & Pav. |
4.89 |
|
Tetragastris altissima(Aubl.) Swart (sinonimia de Protium altissimum (Aubl.) Marchand) |
3.83 |
|
Yhon Hittler |
Iriartea deltoidea Ruiz & Pav. |
22.64 |
Brosimum alicastrum Sw. |
13.60 |
|
Otoba parvifolia (Markgr.) A. H. Gentry |
7.18 |
|
Juan Raul 2 |
Iriartea deltoidea Ruiz & Pav. |
21.64 |
Otoba parvifolia (Markgr.) A. H. Gentry |
6.46 |
|
Quararibea wittii K. Schum. & Ulbr. |
5.89 |
|
Yesica |
Tachigali amarumayu Huamantupa, H. C. Lima & D. B. O. S. Cardoso |
7.96 |
Cecropia sciadophylla Mart. |
4.74 |
|
Helicostylis tomentosa (Poepp. & Endl.) J. F. Macbr. |
4.40 |
Yhon Hittler y Juan Raul 2 presentaron una concentración mucho más marcada del IVI en Iriartea deltoidea Ruiz & Pav., con valores de 22.64 y 21.64 %, respectivamente. La concentración del IVI en pocas especies es frecuente en comunidades tropicales en recuperación, donde un grupo reducido de taxones puede representar gran parte de la abundancia y del área basal del bosque (Asigbaase et al., 2019; Villa et al., 2019).
En Yesica, la mayor importancia ecológica correspondió a Tachigali amarumayu Huamantupa, H. C. Lima & D. B. O. S. Cardoso (7.96 %), seguida de Cecropia sciadophylla Mart. (7.74 %) y Helicostylis tomentosa (Poepp. & Endl.) J. F. Macbr. (4.40 %). Desde la perspectiva de la restauración, el IVI permite reconocer especies representativas de la estructura local, porque integra su abundancia, distribución espacial y contribución al área basal. Sin embargo, un valor alto no demuestra por sí solo persistencia, resiliencia o capacidad para acelerar la sucesión. La selección de especies para intervenir áreas mineras debe complementar el IVI con información sobre regeneración natural, tolerancia a las condiciones del sitio y atributos funcionales relacionados con el establecimiento y el crecimiento (Gastauer et al., 2020). En consecuencia, I. deltoidea y Euterpe precatoria Mart. pueden considerarse especies estructuralmente representativas de varias concesiones, mientras que T. amarumayu y C. sciadophylla aportan referencias de una composición local diferente.
Similitud florística
La similitud florística evidenció una diferenciación marcada entre las seis concesiones. Washington III y Sarayacu registraron la mayor semejanza, con valores de Jaccard=0.9620 y Bray-Curtis=0.9476 (Figura 3).

La proximidad entre puntos indica mayor similitud florística. Estrés=0.0001.
Figura 3. Ordenación NMDS de seis concesiones mineras basada en la disimilitud de Bray-Curtis.
En contraste, Washington III y Sarayacu tuvieron similitudes prácticamente nulas con Juan Raul 2, tanto en presencia de especies como en abundancia. Estos resultados evidencian un reemplazo considerable de taxones entre grupos de concesiones y muestran que una riqueza semejante no implica, necesariamente, una composición florística equivalente. La evaluación conjunta de la identidad y la abundancia de los taxa resulta indispensable para reconocer trayectorias diferentes de reorganización de la comunidad, porque los cambios en dominancia pueden permanecer ocultos cuando únicamente se comparan valores de riqueza o diversidad (Chazdon et al., 2022).
Yhon Hittler y Juan Raul 2 presentaron una similitud de Jaccard de 0.2576, pero una similitud de Bray-Curtis considerablemente mayor, de 0.6638. Esta diferencia indica que compartieron una proporción limitada de taxones, aunque las especies comunes registraron abundancias relativamente semejantes. El patrón coincide con la elevada importancia ecológica de Iriartea deltoidea en ambas concesiones, donde concentró más de 21 % del IVI. La variación entre los índices muestra que la diversidad beta refleja, tanto el reemplazo de especies como la distribución de sus abundancias; componentes que pueden responder de manera distinta a la configuración y heterogeneidad del paisaje (Juárez-Fragoso et al., 2024).
En un enfoque de restauración, estos resultados indican que una sola concesión no representa toda la heterogeneidad florística de la cuenca del Río Inambari. Washington III y Sarayacu pueden funcionar como referencias de una misma configuración comunitaria, mientras que Edmilot I, Yesica y el conjunto formado por Yhon Hittler y Juan Raul 2 aportan condiciones florísticas complementarias. La selección de varios sitios de referencia permite incorporar la variabilidad espacial del paisaje y evita establecer metas de recuperación basadas en una comunidad única, especialmente cuando la conectividad, la cobertura forestal circundante y las condiciones locales pueden modificar el establecimiento y la composición de la vegetación durante la restauración (San-José et al., 2022).
Aplicación de los sitios de referencia en la restauración
Es posible utilizar los sitios identificados de manera complementaria para definir atributos de referencia según las condiciones que se busque recuperar. Washington III y Sarayacu son referencias de comunidades con alta diversidad efectiva y composición semejante; Edmilot I proporciona valores asociados con mayor riqueza y área basal; y Yesica incorpora una configuración florística distinta con una distribución más equilibrada de las especies dominantes. Estos atributos son factibles de emplearse para seleccionar especies nativas, establecer metas de composición y estructura, así como para evaluar la trayectoria de las áreas intervenidas. El uso de referencias múltiples incorpora la variabilidad ecológica del paisaje y evita establecer metas de restauración a partir de una sola condición forestal (Beauchamp & Shafroth, 2011; Ruiz-Jaén & Aide, 2005).
Conclusiones
Las seis concesiones presentan diferencias en diversidad efectiva, estructura, dominancia y composición florística. Washington III y Sarayacu destacan por su elevada diversidad de especies comunes y alta similitud florística, mientras que Edmilot I presenta la mayor riqueza observada y área basal. Yesica complementa estas referencias al registrar el mayor número efectivo de especies dominantes y una composición florística diferenciada. Yhon Hittler y Juan Raul 2 representan una condición de menor diversidad efectiva y mayor dominancia de Iriartea deltoidea. A partir de la integración de estos atributos se identifican sitios de referencia complementarios que constituyen distintas configuraciones ecológicas del paisaje y proporcionan valores comparativos para orientar futuras acciones de restauración en bosques periurbanos afectados por actividades mineras en la Amazonía peruana.
Agradecimientos
Los autores agradecen a la Universidad Nacional Amazónica de Madre de Dios por el apoyo económico brindado mediante fondos concursables para proyectos de investigación. Además, se agradece a Marilyn Zuleth Ruiz Guzmán por su implicación en el proyecto.
Conflicto de intereses
Los autores declaran no tener conflictos de intereses
Contribución por autor
Carlos Emerico Nieto Ramos y Luis Armando Nieto Ramos: conceptualización, trabajo de campo y revisión del manuscrito; Bayron Alexander Ruiz-Blandon: revisión técnica y corrección del manuscrito; Efrén Hernández-Alvarez: análisis de la información y trabajo de campo; Rosario Marilu Bernaola-Paucar: conceptualización, supervisión, análisis de la información y redacción del manuscrito. Todos los autores revisaron y aprobaron la versión final del manuscrito.
Referencias
Alvarez-Montalván, C. E., Manrique-León, S., Vela-Da Fonseca, M., Cardozo-Soarez, J., Callo-Ccorcca, J., Bravo-Camara, P., Castañeda-Tinco, I., & Alvarez-Orellana, J. (2021). Composición florística, estructura y diversidad arbórea de un bosque amazónico en Perú. Scientia Agropecuaria, 12(1), 73-82. https://doi.org/10.17268/sci.agropecu.2021.009
Asigbaase, M., Sjogersten, S., Lomax, B. H., & Dawoe, E. (2019). Tree diversity and its ecological importance value in organic and conventional cocoa agroforests in Ghana. PLoS ONE, 14(1), Article e0210557. https://doi.org/10.1371/journal.pone.0210557
Beauchamp, V. B., & Shafroth, P. B. (2011). Floristic composition, beta diversity, and nestedness of reference sites for restoration of xeroriparian areas. Ecological Applications, 21(2), 465-476. https://doi.org/10.1890/09-1638.1
Bray, J. R., & Curtis, J. T. (1957). An ordination of the upland forest communities of southern Wisconsin. Ecological Monographs, 27(4), 325-349. https://doi.org/10.2307/1942268
Caballero-Espejo, J., Messinger, M., Román-Dañobeytia, F., Ascorra, C., Fernandez, L. E., & Silman, M. (2018). Deforestation and forest degradation due to gold mining in the Peruvian Amazon: A 34-year perspective. Remote Sensing, 10(12), Article 1903. https://doi.org/10.3390/rs10121903
Chazdon, R. L., Norden, N., Colwell, R. K., & Chao, A. (2022). Monitoring recovery of tree diversity during tropical forest restoration: lessons from long-term trajectories of natural regeneration. Philosophical Transactions of the Royal Society B, 378(1867), Article 20210069. https://doi.org/10.1098/rstb.2021.0069
Chazdon, R. L., Peres, C. A., Dent, D., Sheil, D., Lugo, A. E., Lamb, D., Stork, N. E., & Miller, S. E. (2009). The potential for species conservation in tropical secondary forests. Conservation Biology, 23(6), 1406-1417. https://doi.org/10.1111/j.1523-1739.2009.01338.x
Clarke, K. R. (1993). Non-parametric multivariate analyses of changes in community structure. Australian Journal of Ecology, 18(1), 117-143. https://doi.org/10.1111/j.1442-9993.1993.tb00438.x
Curtis, J. T., & McIntosh, R. P. (1951). An upland forest continuum in the Prairie-Forest Border Region of Wisconsin. Ecology, 32(3), 476-496. https://doi.org/10.2307/1931725
Garate-Quispe, J., Herrera-Machaca, M., Pareja-Auquipata, V., Alarcón-Aguirre, G., Baez-Quispe, S., & Carpio-Vargas, E. E. (2024). Resilience of aboveground biomass of secondary forests following the abandonment of gold mining activity in the southeastern Peruvian Amazon. Diversity, 16(4), Article 233. https://doi.org/10.3390/d16040233
Gastauer, M., de Medeiros-Sarmento, P. S., Araujo-Santos, V. C., Frois-Caldeira, C., Ramos, S. J., Teodoro, G. S., & Siqueira, J. O. (2020). Vegetative functional traits guide plant species selection for initial mineland rehabilitation. Ecological Engineering, 148, Article 105763. https://doi.org/10.1016/j.ecoleng.2020.105763
Govaerts, R., Lughadha, E. N., Black, N., Turner, R., & Paton, A. (2021). The World Checklist of Vascular Plants, a continuously updated resource for exploring global plant diversity. Scientific Data, 8(1), Article 215. https://doi.org/10.1038/s41597-021-00997-6
Hammer, Ø., Harper, D. A. T., & Ryan, P. D. (2001). PAST: Paleontological Statistics Software Package for Education and Data Analysis. Palaeontologia Electronica, 4(1), Article 4. https://palaeo-electronica.org/2001_1/past/issue1_01.htm
Higgs, E., Falk, D. A., Guerrini, A., Hall, M., Harris, J., Hobbs, R. J., Jackson, S. T., Rhemtulla, J. M., & Throop, W. (2014). The changing role of history in restoration ecology. Frontiers in Ecology and the Environment, 12(9), 499-506. https://doi.org/10.1890/110267
Jaccard, P. (1912). The distribution of the flora in the alpine zone. New Phytologist, 11(2), 37-50. https://doi.org/10.1111/j.1469-8137.1912.tb05611.x
Jost, L., & González-Oreja, J. (2012). Midiendo la diversidad biológica: Más allá del índice de Shannon. Acta Zoológica Lilloana, 56(1-2), 3-14. https://www.lillo.org.ar/journals/index.php/acta-zoologica-lilloana/article/view/240
Juárez-Fragoso, M. A., Perroni, Y., Dáttilo, W., Gómez-Díaz, J. A., & Guevara, R. (2024). The landscape scale of effect on the alpha and beta diversities of woody species in a semideciduous tropical forest. Landscape Ecology, 39, Article 33. https://doi.org/10.1007/s10980-024-01809-z
Nytch, C. J., Rojas-Sandoval, J., Erazo-Oliveras, A., Santiago-García, R. J., & Meléndez-Ackerman, E. J. (2023). Effects of historical land use and recovery pathways on composition, structure, ecological function, and ecosystem services in a Caribbean secondary forest. Forest Ecology and Management, 546, Article 121311. https://doi.org/10.1016/j.foreco.2023.121311
Pitman, N. C. A., Silman, M. R., & Terborgh, J. W. (2013). Oligarchies in Amazonian tree communities: a ten-year review. Ecography, 36(2), 114-123. https://doi.org/10.1111/j.1600-0587.2012.00083.x
Pretzsch, H., Biber, P., Uhl, E., Dahlhausen, J., Rötzer, T., Caldentey, J., Koike, T., van Con, T., Chavanne, A., Seifert, T., du Toit, B., Farnden, C., & Pauleit, S. (2015). Crown size and growing space requirement of common tree species in urban centres, parks, and forests. Urban Forestry & Urban Greening, 14(3), 466-479. https://doi.org/10.1016/j.ufug.2015.04.006
Python Software Foundation. (2026). Python 3.13.5 [Software]. Python Software Foundation. https://www.python.org/downloads/release/python-3135/
Román-Dañobeytia, F., Cabanillas, F., Lefebvre, D., Farfan, J., Alferez, J., Polo-Villanueva, F., Llacsahuanga, J., Vega, C. M., Velasquez, M., Corvera, R., Condori, E., Ascorra, C., Fernandez, L. E., & Silman, M. R. (2021). Survival and early growth of 51 tropical tree species in areas degraded by artisanal gold mining in the Peruvian Amazon. Ecological Engineering, 159, Article 106097. https://doi.org/10.1016/j.ecoleng.2020.106097
Rosenfield, M. F., Jakovac, C. C., Vieira, D. L. M., Poorter, L., Brancalion, P. H. S., Vieira, I. C. G., de Almeida, D. R. A., Massoca, P., Schietti, J., Albernaz, A. L. M., Ferreira, M. J., & Mesquita, R. C. G. (2023). Ecological integrity of tropical secondary forests: concepts and indicators. Biological Reviews, 98(2), 662-676. https://doi.org/10.1111/brv.12924
Rother, D. C., Liboni, A. P., Silva-Magnago, L. F., Chao, A., Chazdon, R. L., & Ribeiro-Rodrigues, R. (2019). Ecological restoration increases conservation of taxonomic and functional beta diversity of woody plants in a tropical fragmented landscape. Forest Ecology and Management, 451, Article 117538. https://doi.org/10.1016/j.foreco.2019.117538
Ruiz-Jaén, M. C., & Aide, T. M. (2005). Vegetation structure, species diversity, and ecosystem processes as measures of restoration success. Forest Ecology and Management, 218(1), 159-173. https://doi.org/10.1016/j.foreco.2005.07.008
San-José, M., Werden, L. K., Joyce, F. H., Reid, J. L., Holl, K. D., & Zahawi, R. A. (2022). Effects of landscape structure on restoration success in tropical premontane forest. Scientific Reports, 12, Article 13452. https://doi.org/10.1038/s41598-022-16542-3
SAS Institute Inc. (2016). SAS/STAT User’s Guide, Version 9.4 [Software]. SAS Institute Inc. https://www.scirp.org/reference/referencespapers?referenceid=2877863
Ssekuubwa, E., van Goor, W., Snoep, M., Riemer, K., Wanyama, F., Waiswa, D., Yikii, F., & Tweheyo, M. (2022). Does restoration success vary with tree size under restoration plantings and regrowth forests? Conservation Science and Practice, 4(9), Article e12781. https://doi.org/10.1111/csp2.12781
Velásquez-Ramírez, M. G., Guerrero-Barrantes, J. A., Thomas, E., Gamarra-Miranda, L. A., Pillaca, M., Tello-Peramas, L. D., & Bazán-Tapia, L. R. (2020). Heavy metals in alluvial gold mine spoils in the peruvian amazon. CATENA, 189, Article 104454. https://doi.org/10.1016/j.catena.2020.104454
Villa, P. M., Martins, S. V., Rodrigues, A. C., Safar, N. V. H., Castro-Bonilla, M. A., & Ali, A. (2019). Testing species abundance distribution models in tropical forest successions: Implications for fine-scale passive restoration. Ecological Engineering, 135, 28-35. https://doi.org/10.1016/j.ecoleng.2019.05.015
Zhen, W., Kwan, K. Y., Wang, C.-C., Wu, X., Guo, G., Deng, Q., Huang, X., Wang, X., Zhu, J., & Xu, P. (2022). Community structure of benthic macroinvertebrates in native and introduced mangroves of northern Beibu Gulf, China: Implication for restoring mangrove ecosystems. Marine Pollution Bulletin, 180, Article 113796. https://doi.org/10.1016/j.marpolbul.2022.113796
Todos los textos publicados por la Revista Mexicana de Ciencias Forestales –sin excepción– se distribuyen amparados bajo la licencia Creative Commons 4.0 Atribución-No Comercial (CC BY-NC 4.0 Internacional), que permite a terceros utilizar lo publicado siempre que mencionen la autoría del trabajo y a la primera publicación en esta revista.